
À propos des Pouillots fitis ternes/à pattes sombres vus en France
Par Grégoire Duffez

Le Pouillot fitis Phylloscopus trochilus est un passereau migrateur bien connu en Europe occidentale, où la sous-espèce nominale P. t. trochilus est communément observée en migration et durant la période de reproduction. Il se distingue du Pouillot véloce P. collybita principalement par sa coloration plus jaune, sa taille légèrement supérieure, sa projection primaire plus longue et surtout ses pattes (en général) pâles. Les cris et surtout le chant des deux espèces diffèrent nettement et permettent sans équivoque de les identifier.
Il n’est toutefois pas rare pour les ornithos occidentaux, notamment français, de rencontrer des Pouillots fitis dont l’apparence tranche avec celle des oiseaux habituels, que ce soit en raison de leur coloration plus terne et/ou de leurs pattes sombres. Ces individus sont souvent rapportés comme des Pouillots fitis de type scandinave (voir plus loin), sans que davantage de précision ne soit indiquée ni même recherchée. L’analyse de la proportion des différents phénotypes au sein des oiseaux français ainsi que dans trois autres grandes zones géographiques (Espagne, Israël et Asie) apporte un éclairage supplémentaire sur l’occurrence et la possible distinction des sous-espèces du Pouillot fitis en Europe de l’Ouest.
I – Taxonomie
Espèce polytypique, le Pouillot fitis compte trois sous-espèces (trochilus, acredula et yakutensis) en lien avec une variation géographique clinale, d’ouest en est (Clement 2020). Aux deux extrêmes de l’aire de répartition de l’espèce, les oiseaux diffèrent fortement : ils sont en moyenne plus petits et ont un plumage nettement olive et jaune en Europe de l’Ouest (trochilus), tandis qu’en Sibérie orientale (yakutensis), ils sont plus grands et présentent une coloration brun pâle et blanche ; entre ces deux extrêmes, la sous-espèce acredula est très variable, allant elle aussi d’oiseaux vert olive pâle semblables à trochilus à des individus brun et blanc évoquant yakutensis, avec de nombreux intermédiaires (Cramp & Simmons 2020). Selon van Duivendijk (2011), acredula est en général plus gris dessus et plus blanc dessous que trochilus (souvent presque sans vert ni jaune), mais de nombreux individus sont identiques à ce dernier, et yakutensis se distingue par son dessus gris-brun et son dessous d’un blanc éclatant. Cet auteur précise que la variation est particulièrement marquée chez acredula, certains oiseaux ressemblant beaucoup à ceux de la sous-espèce yakutensis, ce qui rend l’identification de cette dernière particulièrement difficile en dehors de son aire de répartition habituelle. Toutefois à l’automne, les individus sibériens en plumage frais présentent souvent une barre alaire pâle indistincte sur les grandes couvertures (van Duivendijk 2024).
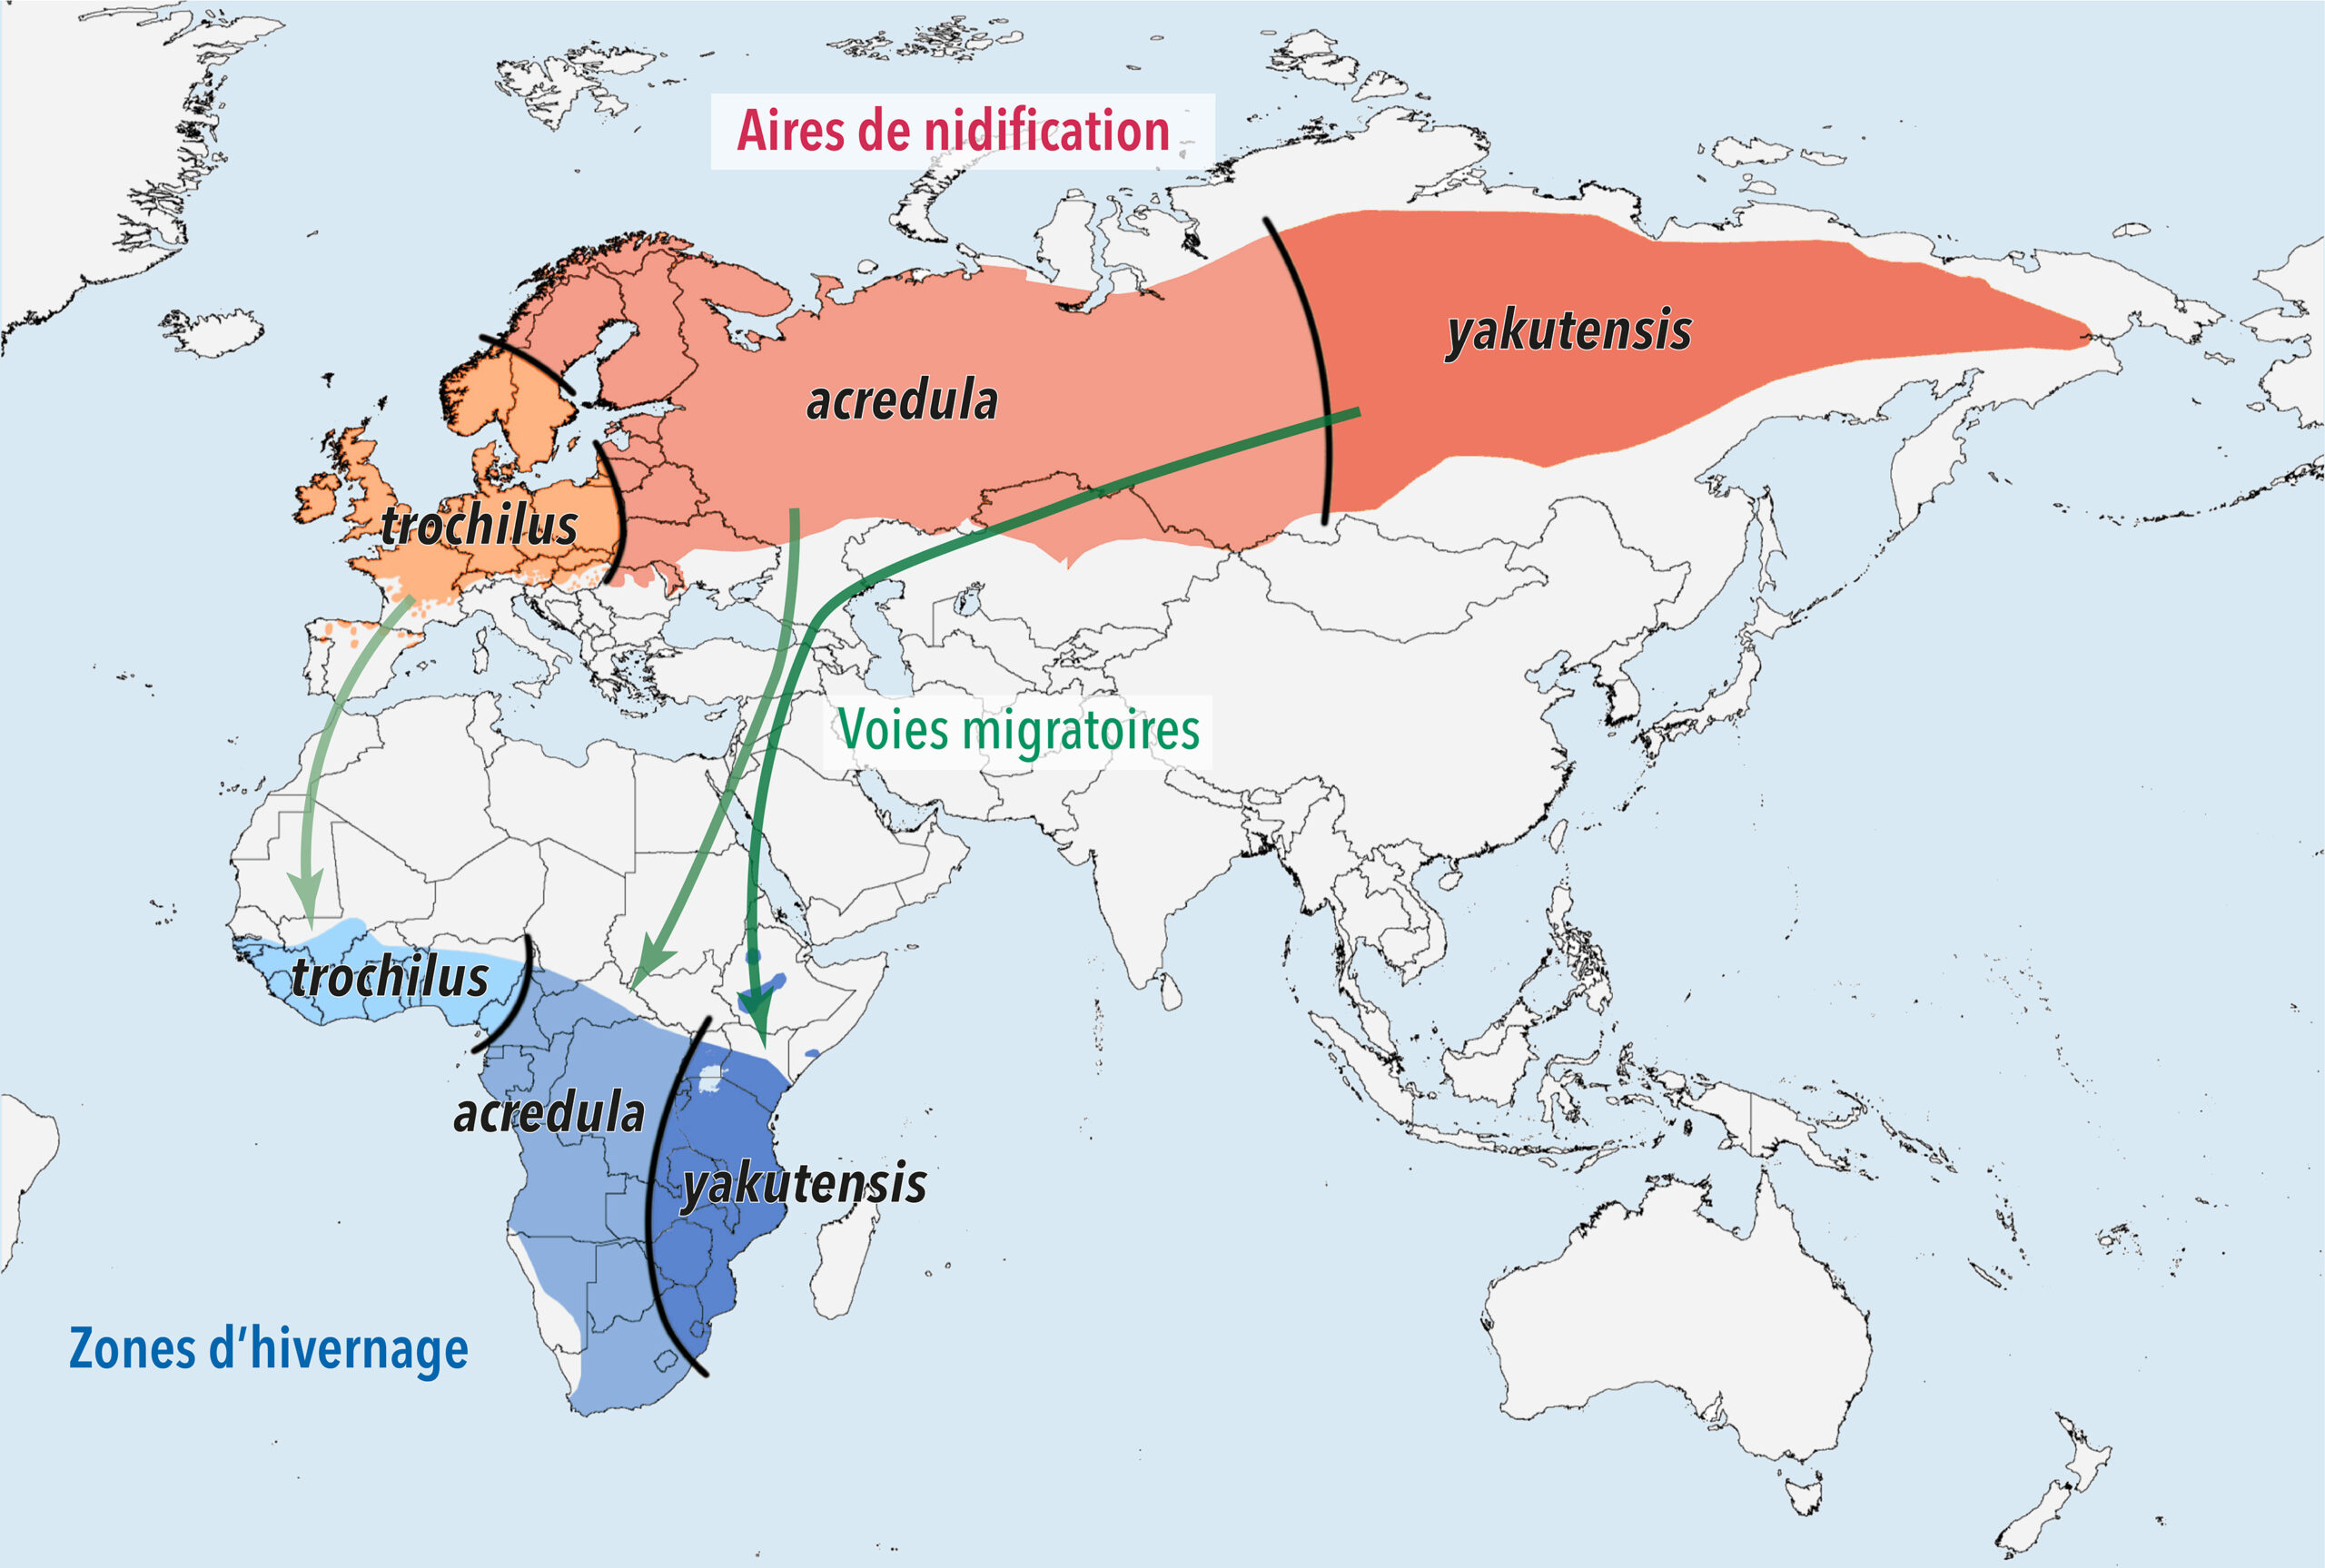
À noter que des analyses génétiques récentes n’ont pas montré de différence significative entre les sous-espèces acredula et yakutensis, alors que trochilus est peu distincte de celles-ci (Lundberg et al. 2017, Sokolovskis et al. 2019). Sokolovskis et al. (2019) proposent toutefois de continuer à distinguer les trois sous-espèces du Pouillot fitis, non sur des bases génétiques, mais en raison de leurs routes migratoires et de leurs zones d’hivernage qui sont tout à fait différentes. En effet, Chamberlain et al. (2000) ont mis en évidence des limites bien définies entre les zones de reproduction et les quartiers d’hiver de trochilus et d’acredula, mais plus floues entre acredula et yakutensis, là encore tant en reproduction qu’en hivernage. Sokolovskis et al.(2018) ont, quant à eux, situé la zone d’hivernage de yakutensis dans l’est de l’Afrique australe (fig. 1).
II – Distribution et migration (fig. 1)
II-1. La sous-espèce occidentale trochilus
La sous-espèce nominale du Pouillot fitis niche dans les îles Britanniques et le sud de la Suède, et du nord de l’Espagne au nord-ouest de la France à l’est jusqu’au sud de la Pologne et à la Roumanie (Carpates méridionales). Elle migre par la péninsule Ibérique (une partie des oiseaux traverse directement la Méditerranée au printemps ; Barriocanal & Robson 2007), suit un étroit corridor le long de la côte ouest-africaine et hiverne en Afrique de l’Ouest, du Sénégal au Cameroun (Hedenström & Petterson 1987, Chamberlain et al. 2000, Bensch et al. 2006, 2009, Lerche-Jørgensen et al. 2017, Clement 2020).
II-2. La sous-espèce nordique acredula
Cette sous-espèce se reproduit en Fennoscandie (sauf dans le sud de la Suède) et de l’Europe centrale et orientale jusqu’à la Sibérie centrale (à l’est jusqu’au fleuve Ienisseï et au sud jusqu’à l’ouest du massif du Sayan). Elle migre par la péninsule des Balkans, la Turquie et le Proche-Orient et hiverne dans l’ouest de l’Afrique australe, au sud du Soudan – Cameroun, Angola, République Démocratique du Congo, Namibie et Afrique du Sud (Hedenström & Petterson 1987, Chamberlain et al. 2000, Bensch et al. 2006, 2009, Clement 2020).
II-3. La sous-espèce orientale yakutensis
La sous-espèce yakutensis occupe le centre et l’est de la Sibérie, du fleuve Ienisseï jusqu’à l’Anadyr, au sud jusqu’au nord de la chaîne du Sayan. Elle migre ensuite selon un schéma un peu atypique, puisqu’elle suit d’abord une route occidentale avant de bifurquer vers le sud-ouest (Sokolovskis 2018). Ce déplacement initial vers l’ouest lui permet probablement de rejoindre le couloir est-européen, qu’elle partage alors avec la sous-espèce acredula, avant de descendre vers l’Afrique. Elle hiverne ensuite dans l’est de l’Afrique australe, du Kenya à l’Afrique du Sud. Des trois sous-espèces du Pouillot fitis (et même parmi l’ensemble des passereaux migrateurs), c’est yakutensis qui a la route migratoire la plus longue, puisqu’elle atteint près de 13000 km (Sokolovskis op. cit.).
III – Principaux types de plumage
En se fondant sur la coloration du plumage et des pattes des Pouillots fitis, on peut définir deux phénotypes extrêmes et deux principaux types de plumages intermédiaires, auxquels s’ajoute une forme rare d’oiseaux extrêmement sombres.
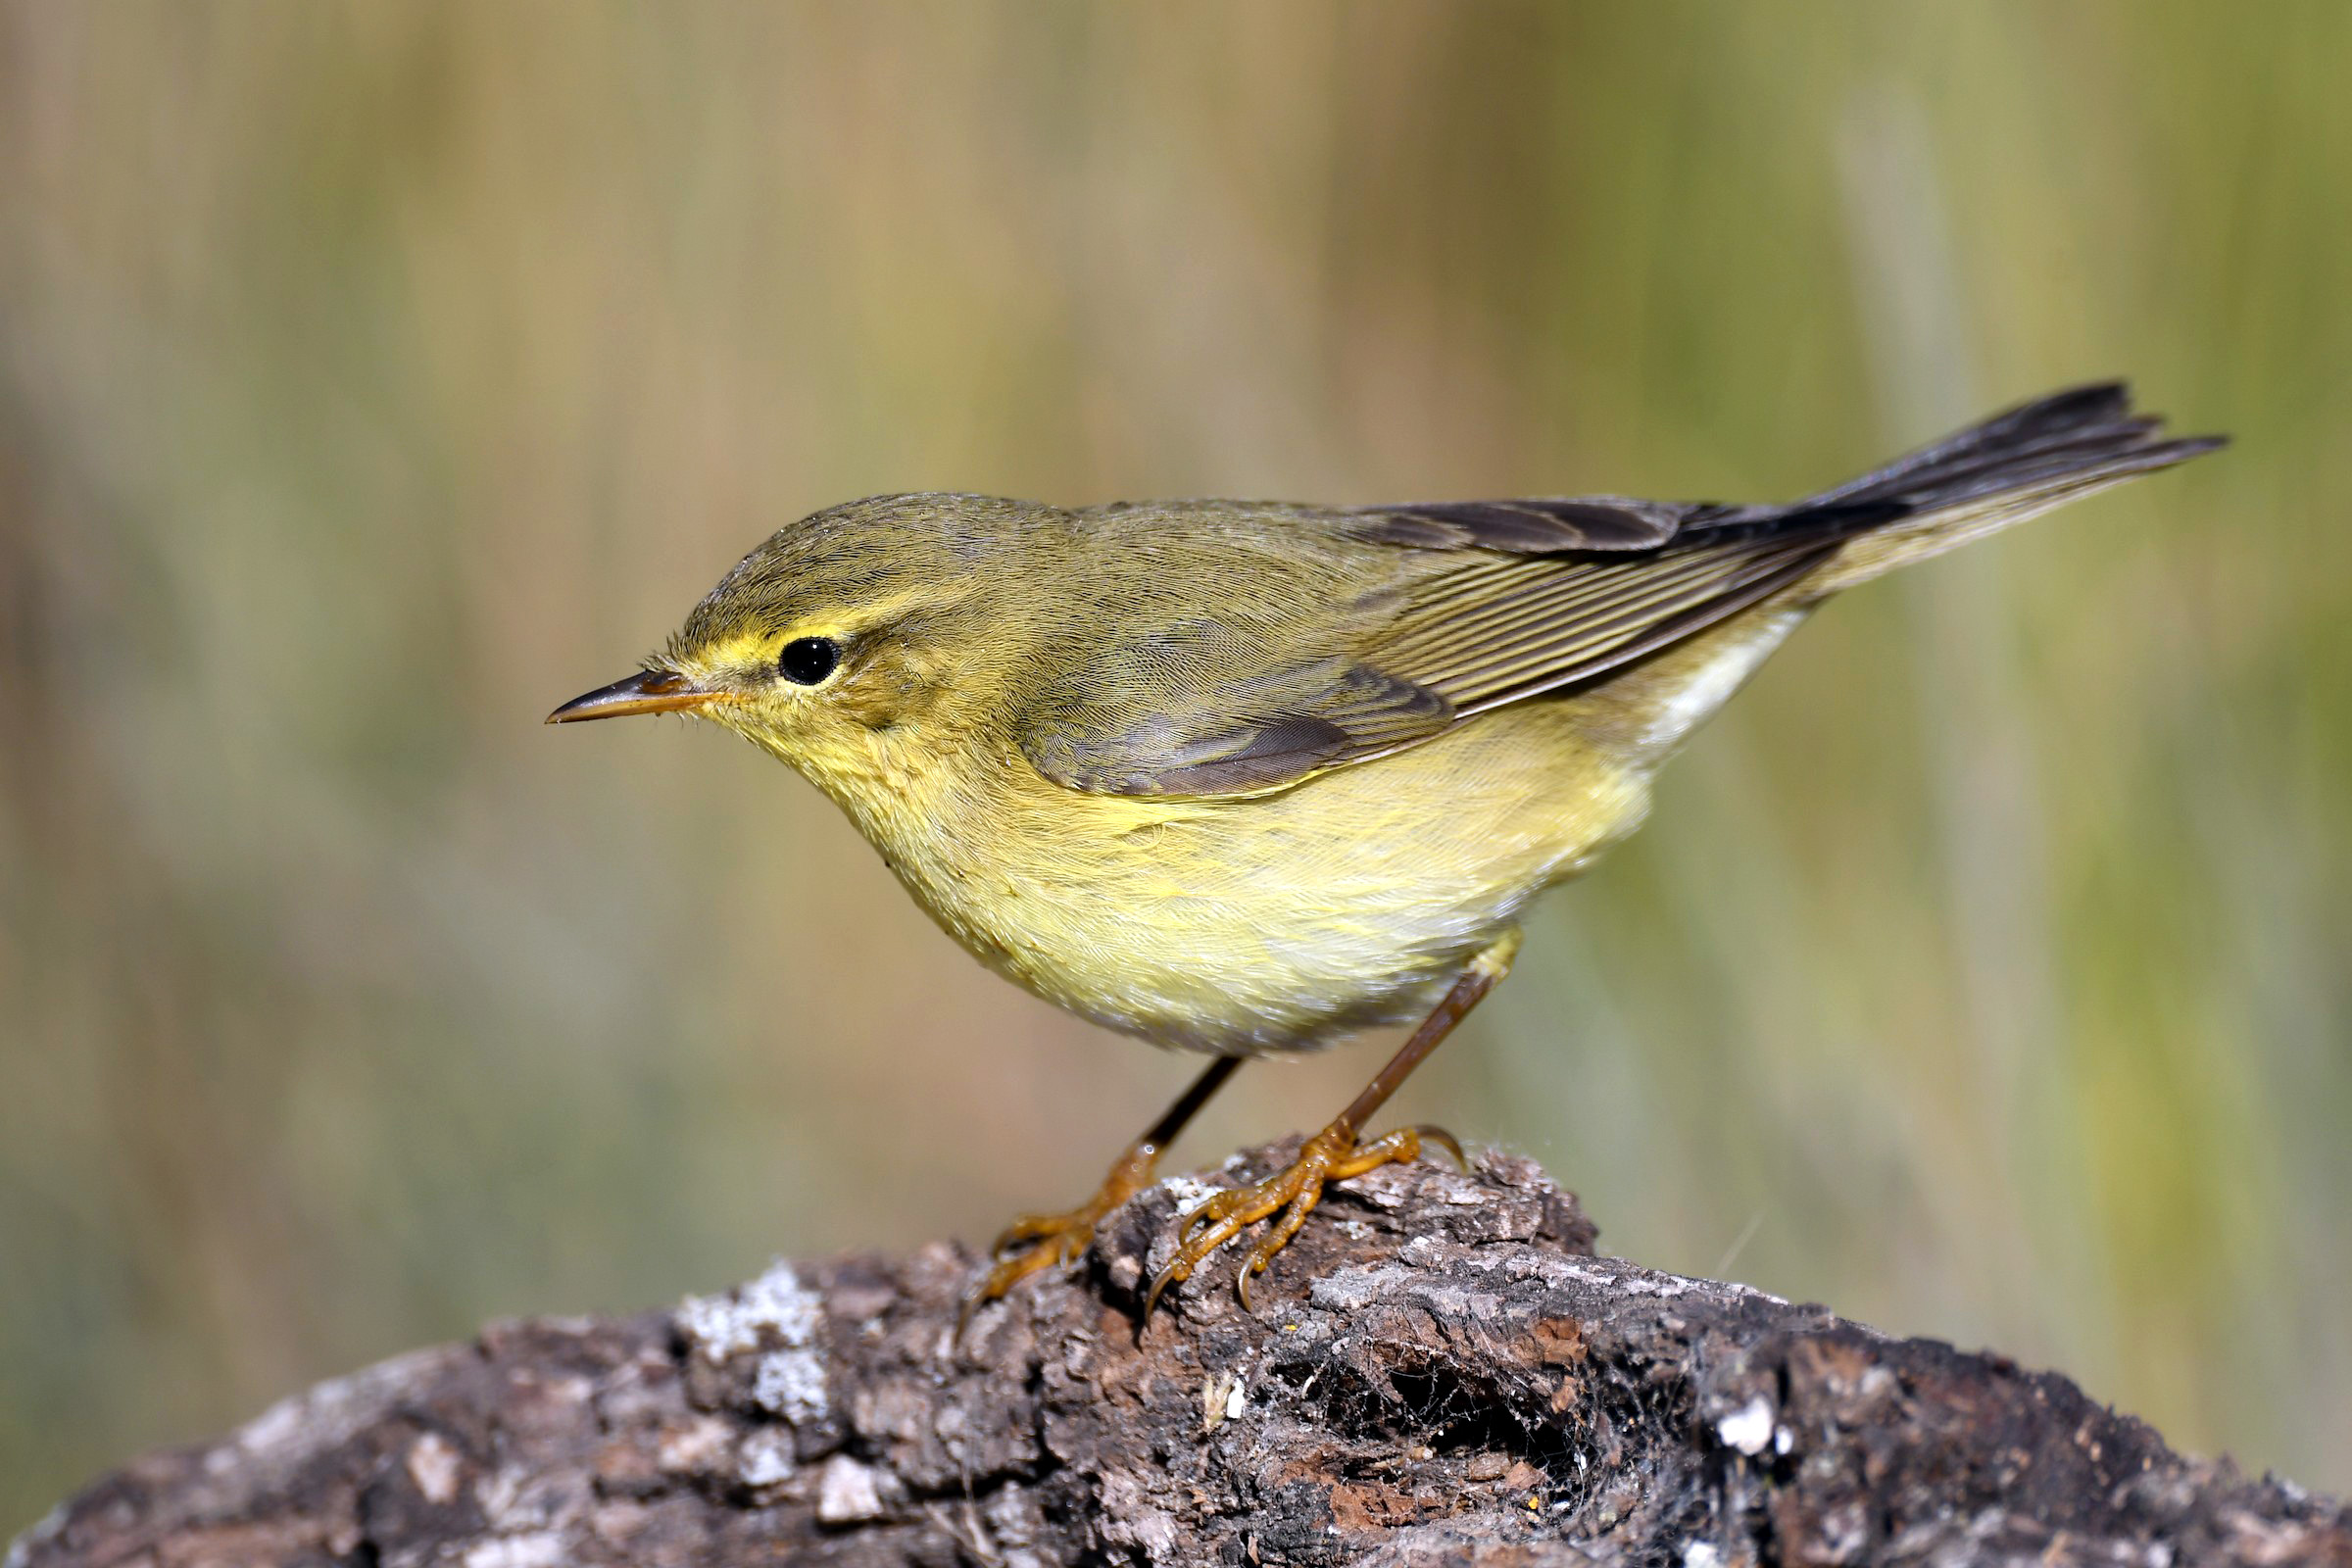
III-1. Phénotype trochilus (P1)
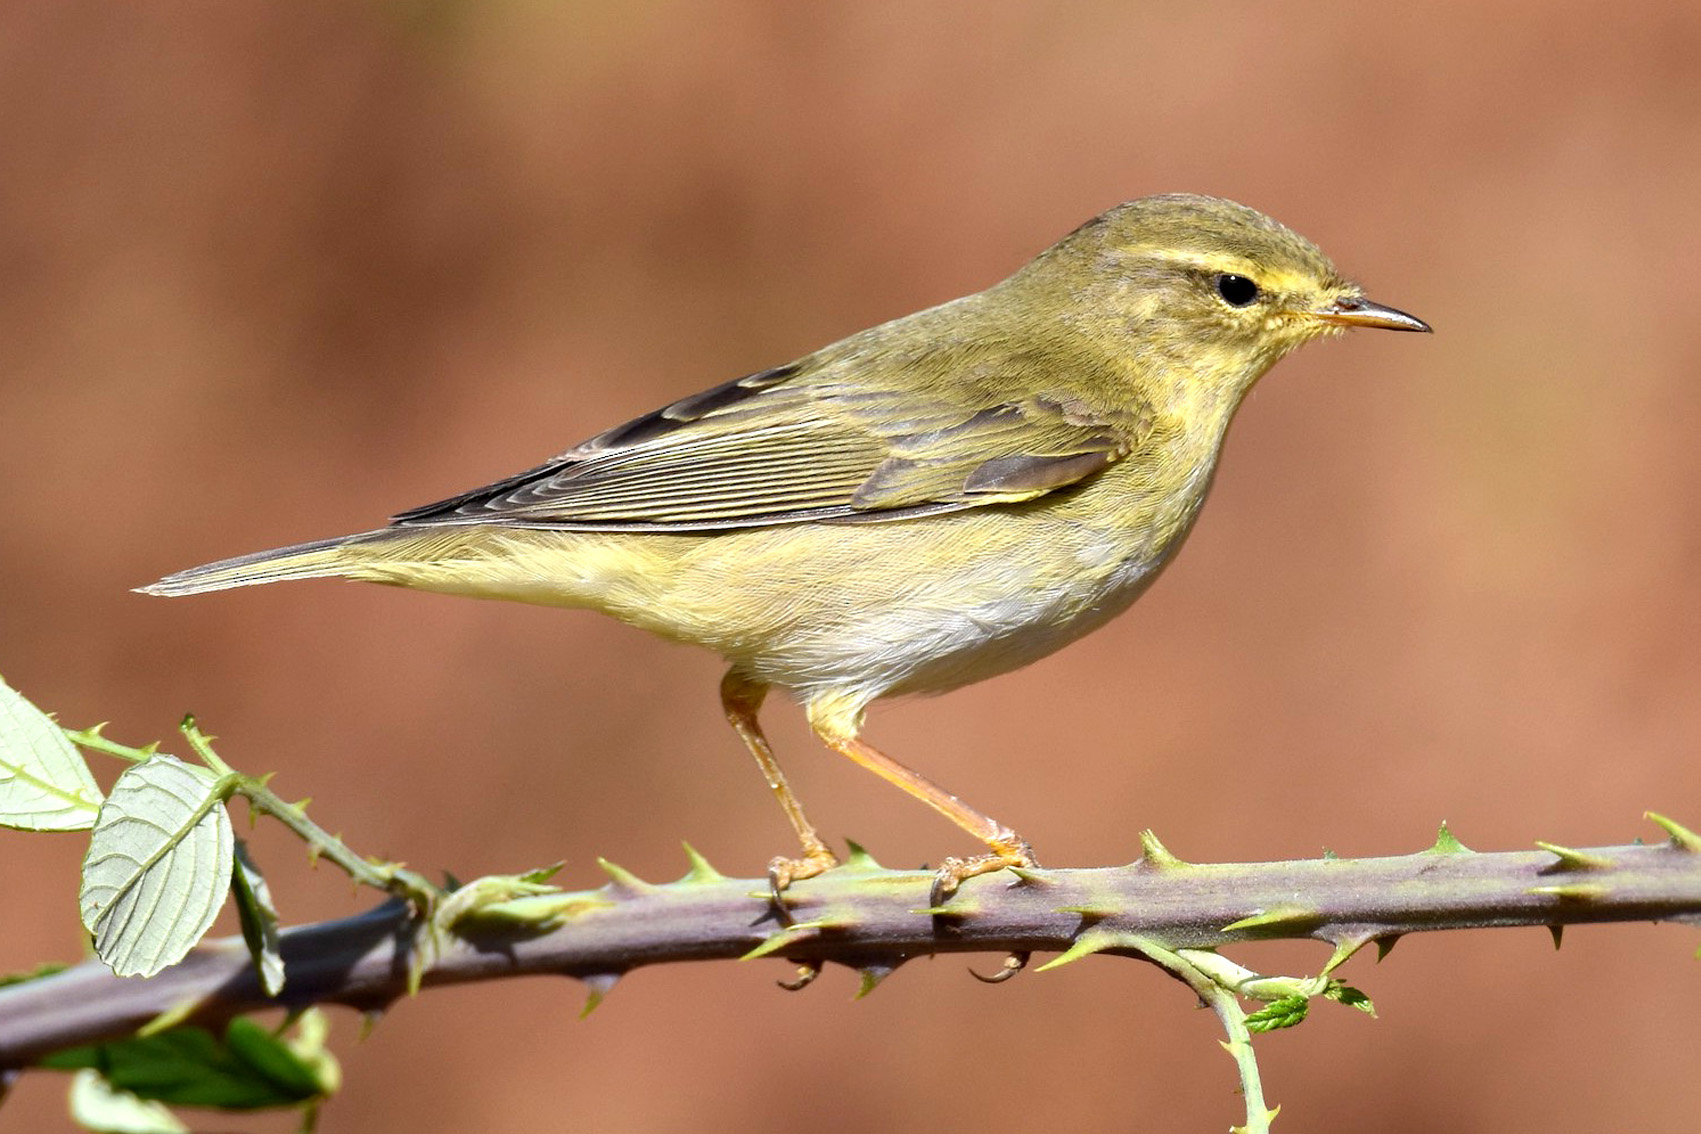
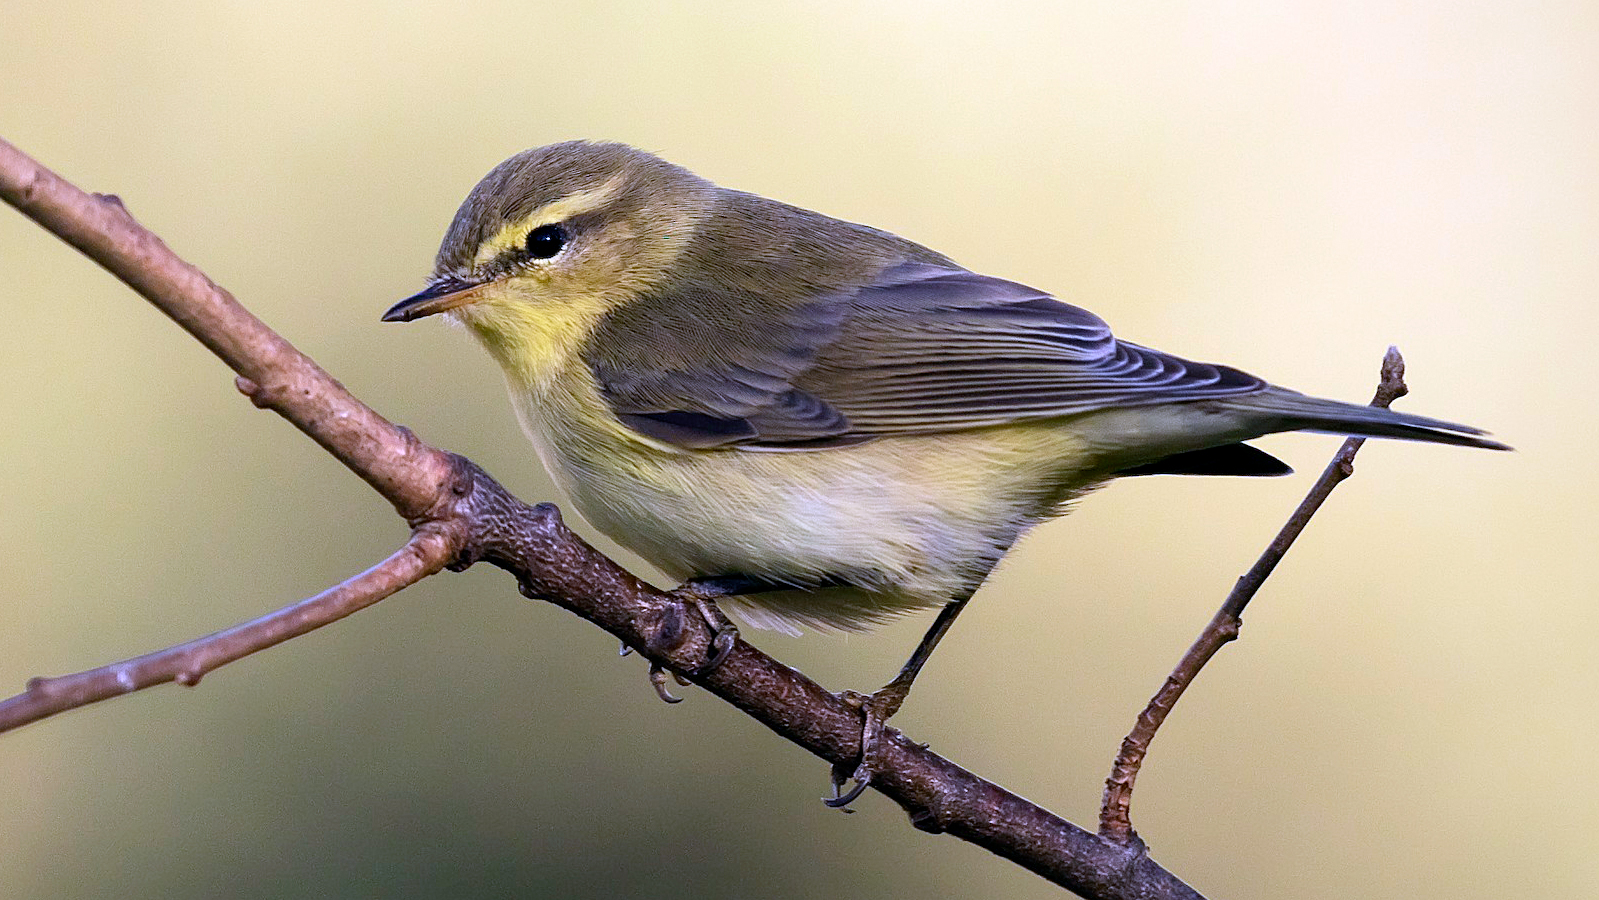
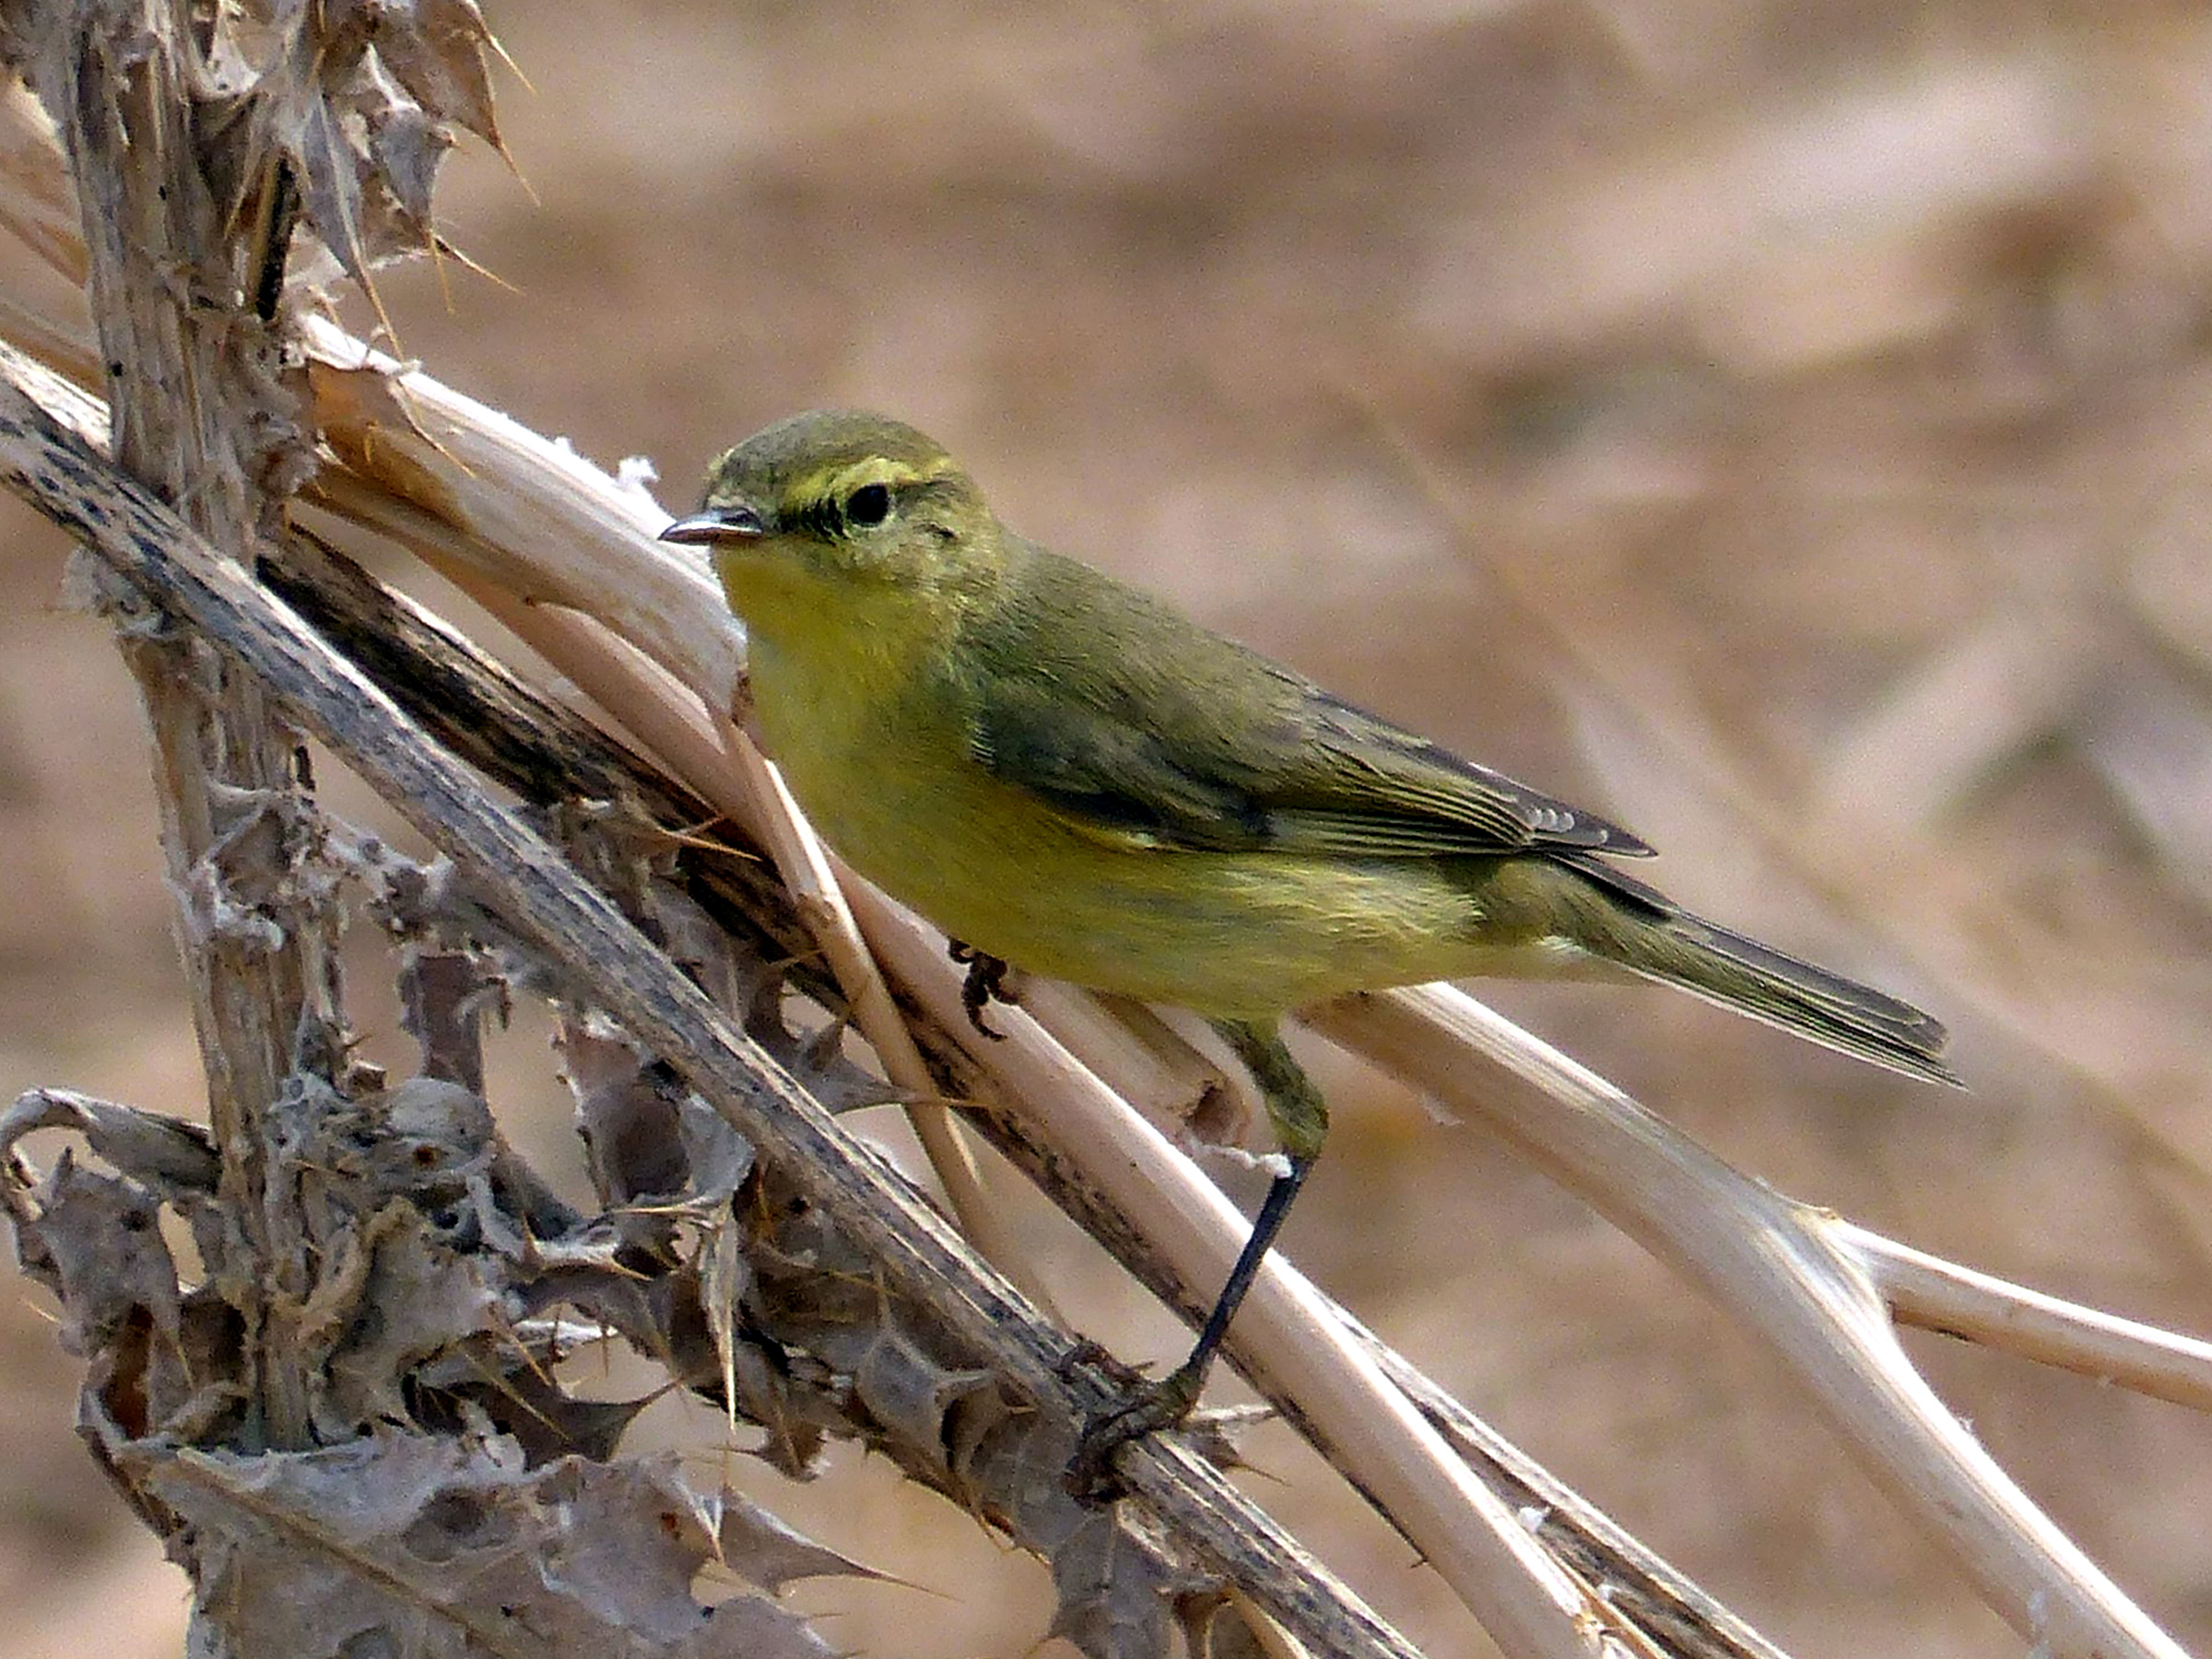
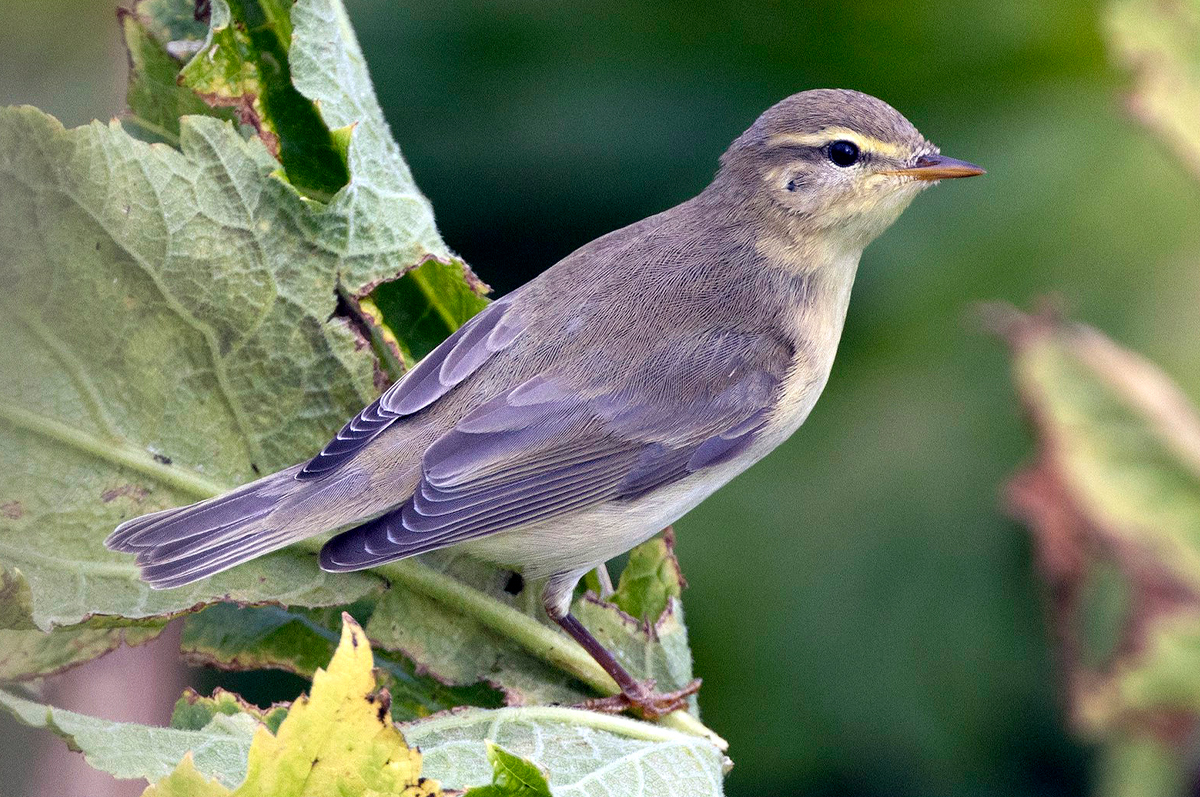
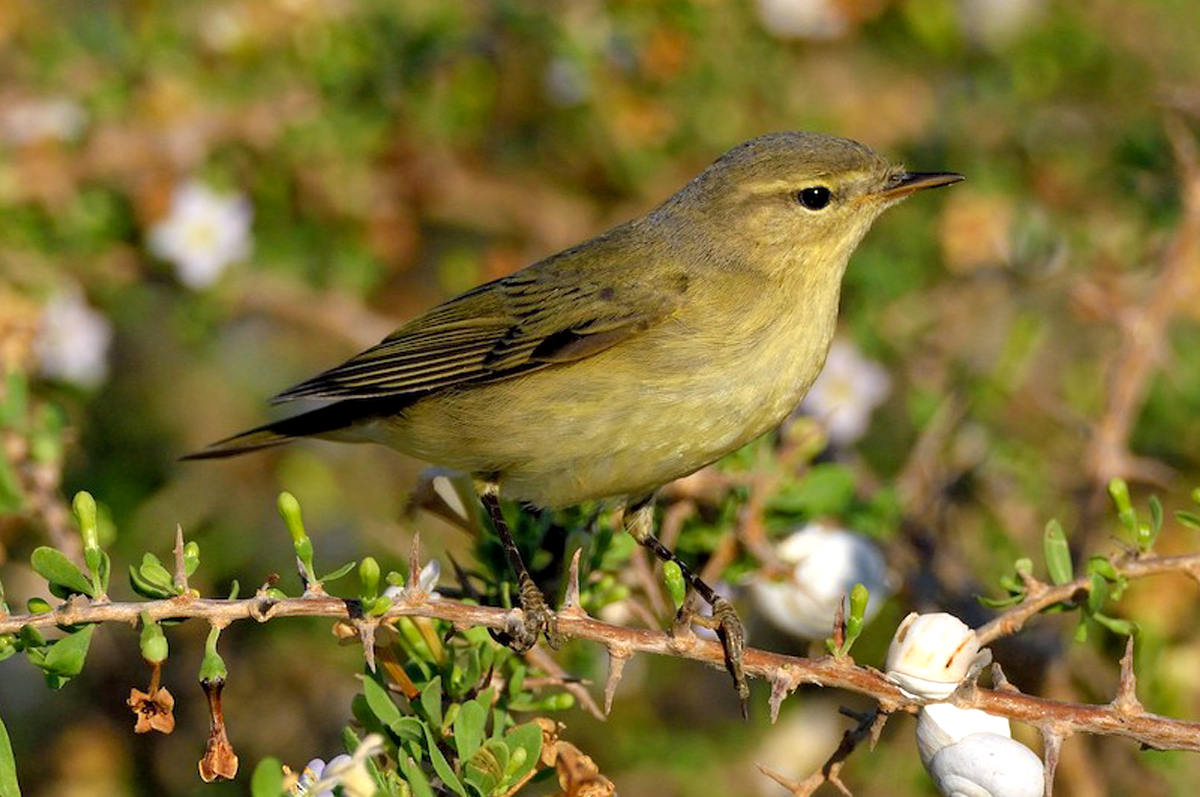
Le phénotype classique «de type trochilus» (nommé P1 ci-après), correspond aux descriptions de l’espèce figurant dans les guides ornithologiques européens : oiseau coloré avec les parties supérieures vert-brun grisâtre, le croupion un peu plus pâle et vert, la gorge et la poitrine jaunâtres, les pattes pâles, et un sourcil jaune long et net (notamment chez les oiseaux de 1re année).


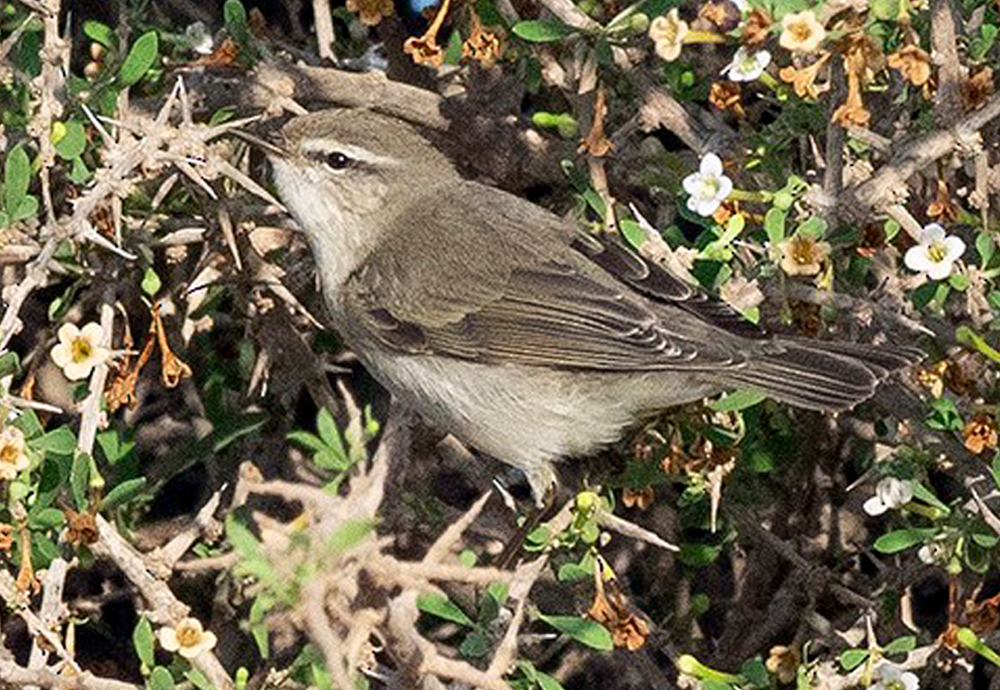
III-2. Phénotype yakutensis (P4)
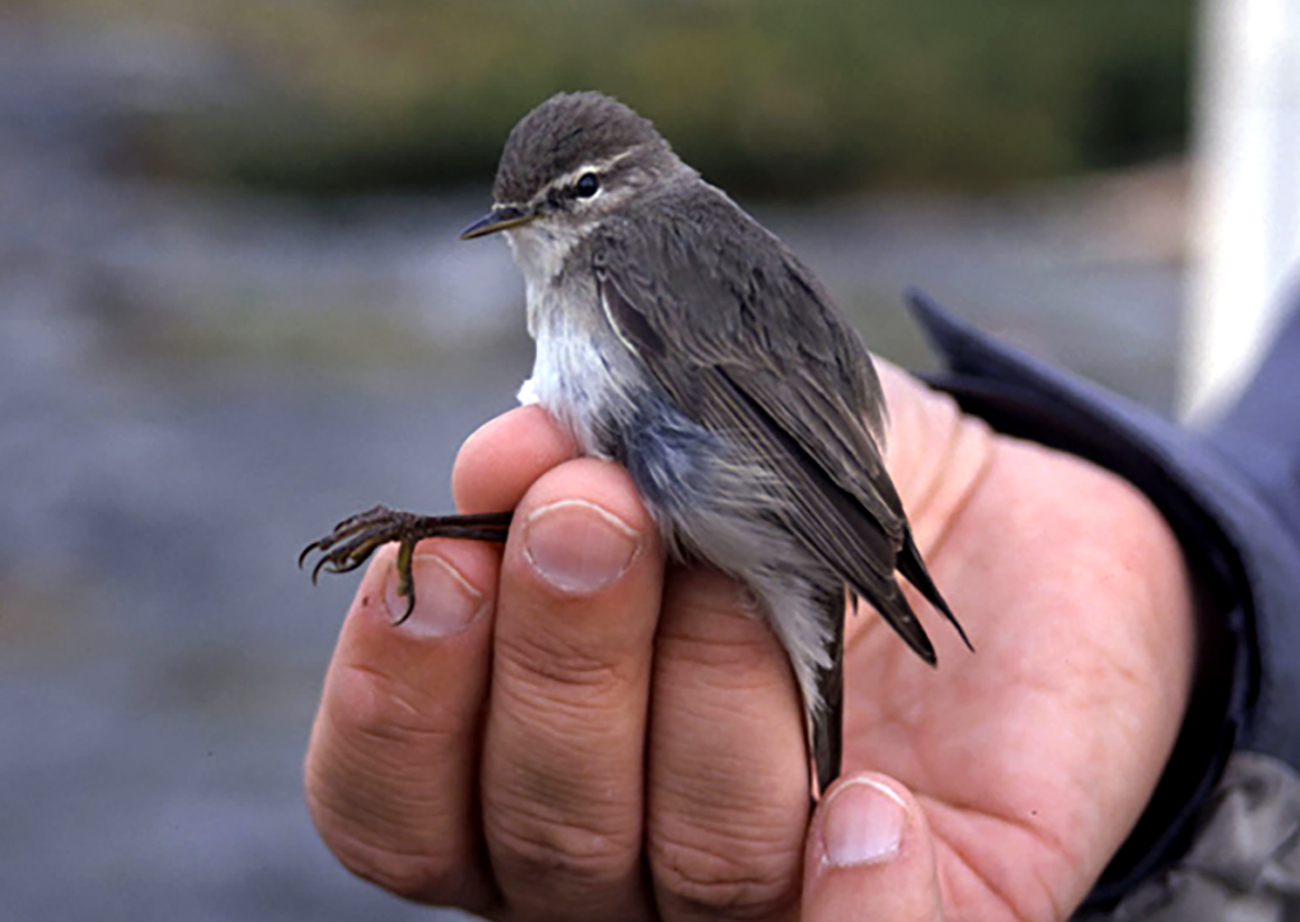
À l’autre extrémité de la variation des phénotypes, on trouve des oiseaux «de type yakutensis» (nommé P4 ci-après), qui sont en moyenne un peu plus grands, avec des ailes et une projection primaire longue (en lien avec leur très important trajet migratoire). Le motif de la tête est souvent marqué, avec un sourcil blanchâtre plus prononcé et une bordure sombre à l’arrière des parotiques. Les parties supérieures sont gris-brun froid, quasiment sans vert, sauf parfois un peu de vert olive sur le croupion et sur le vexille externe des rémiges et des rectrices. Les flancs sont blanchâtres, sans jaune, la poitrine est discrètement striée ou tachetée de grisâtre, et la coloration jaune est restreinte aux couvertures sous-alaires et aux axillaires. Les pattes sont très sombres, d’un noir plus ou moins profond.

III-3. Intermédiaires ternes à pattes pâles (P2)
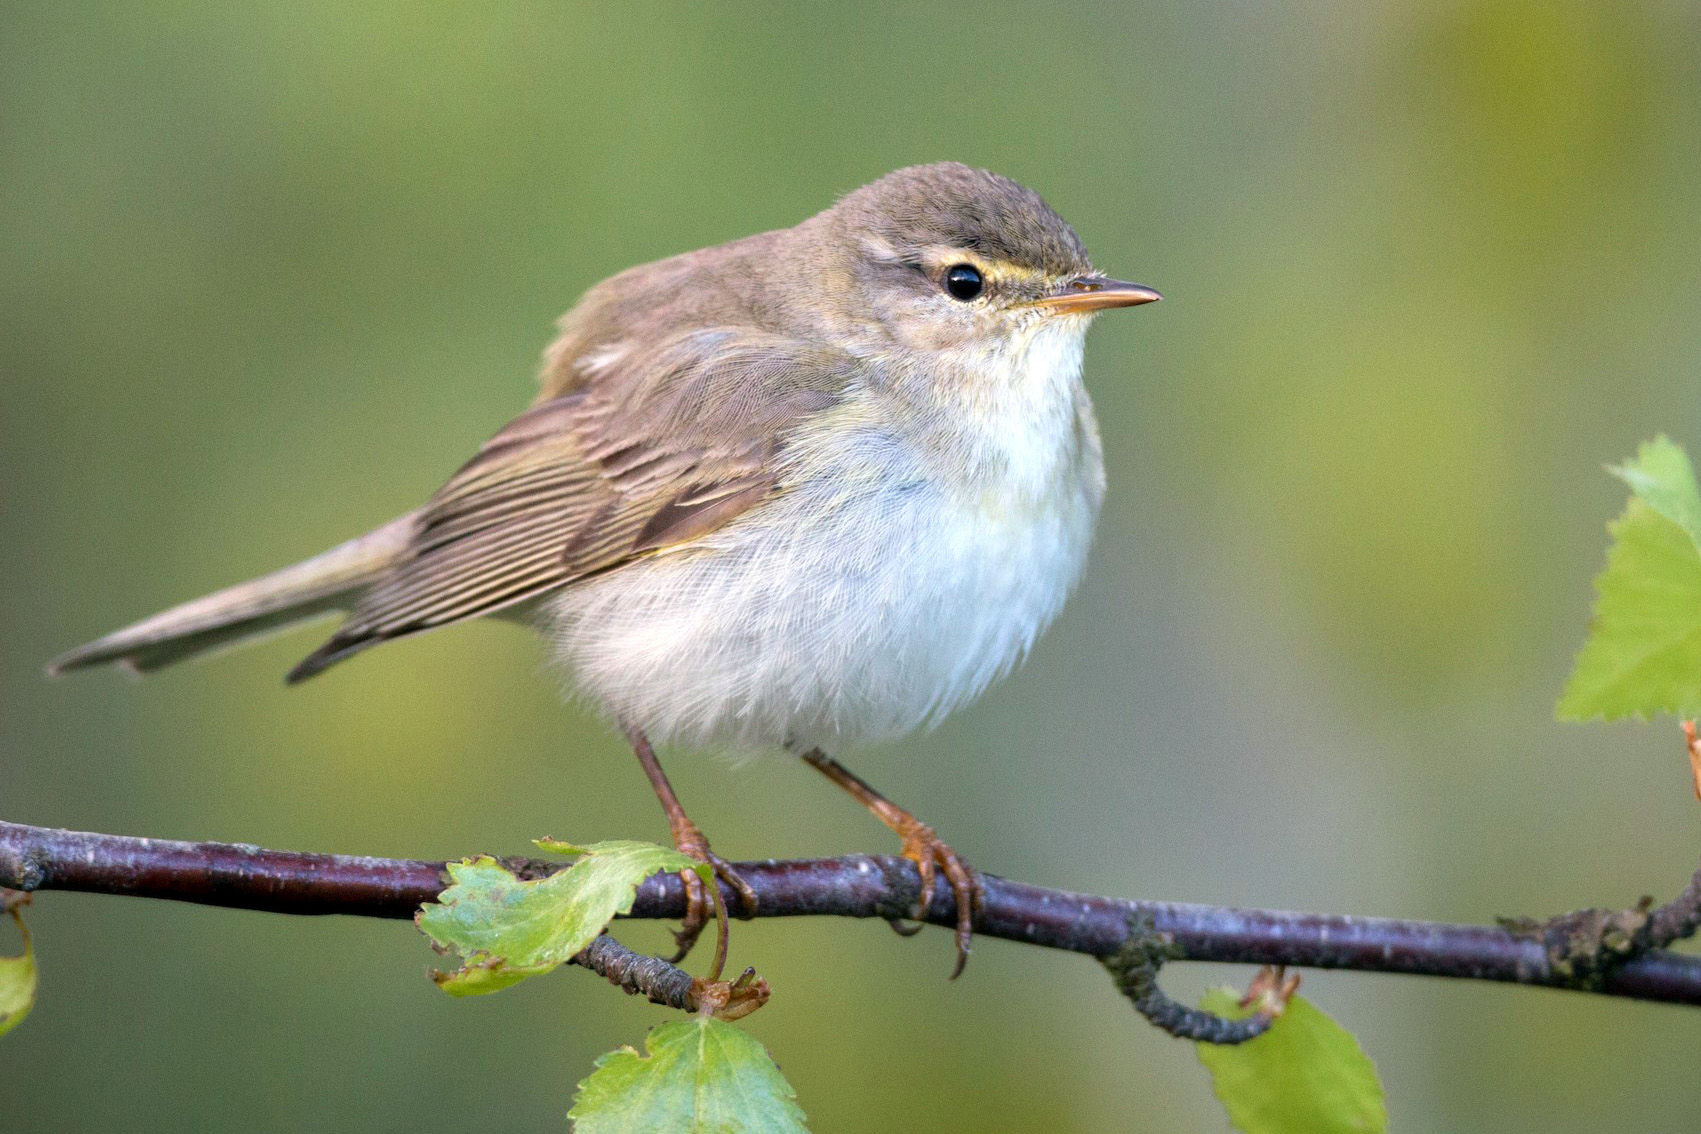
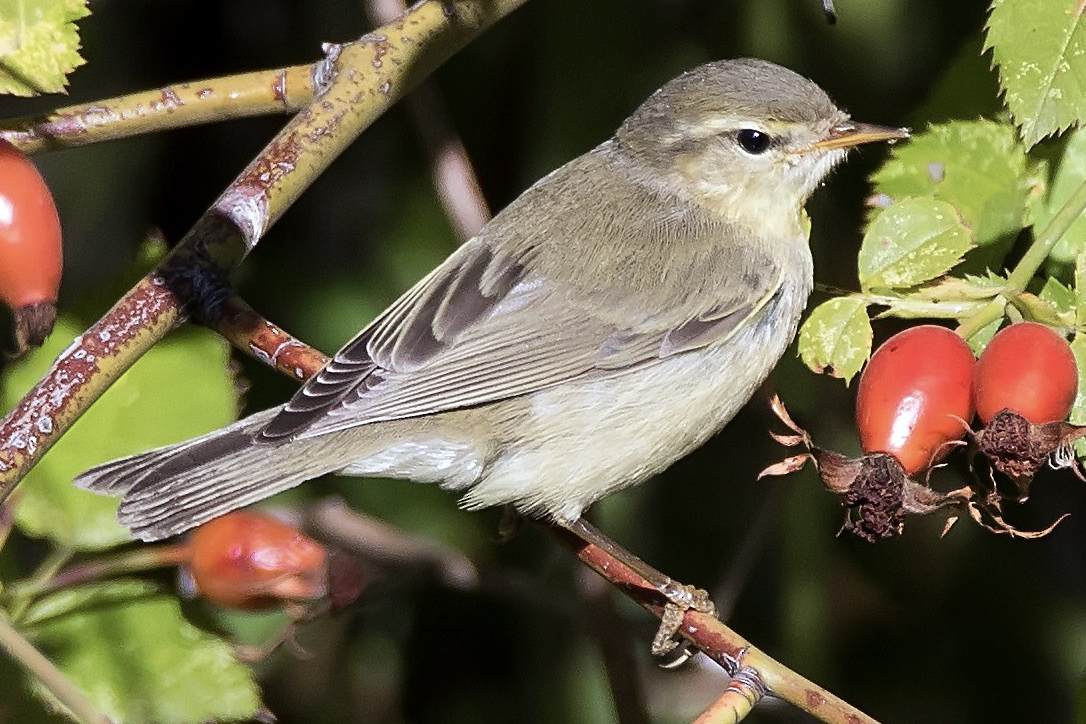
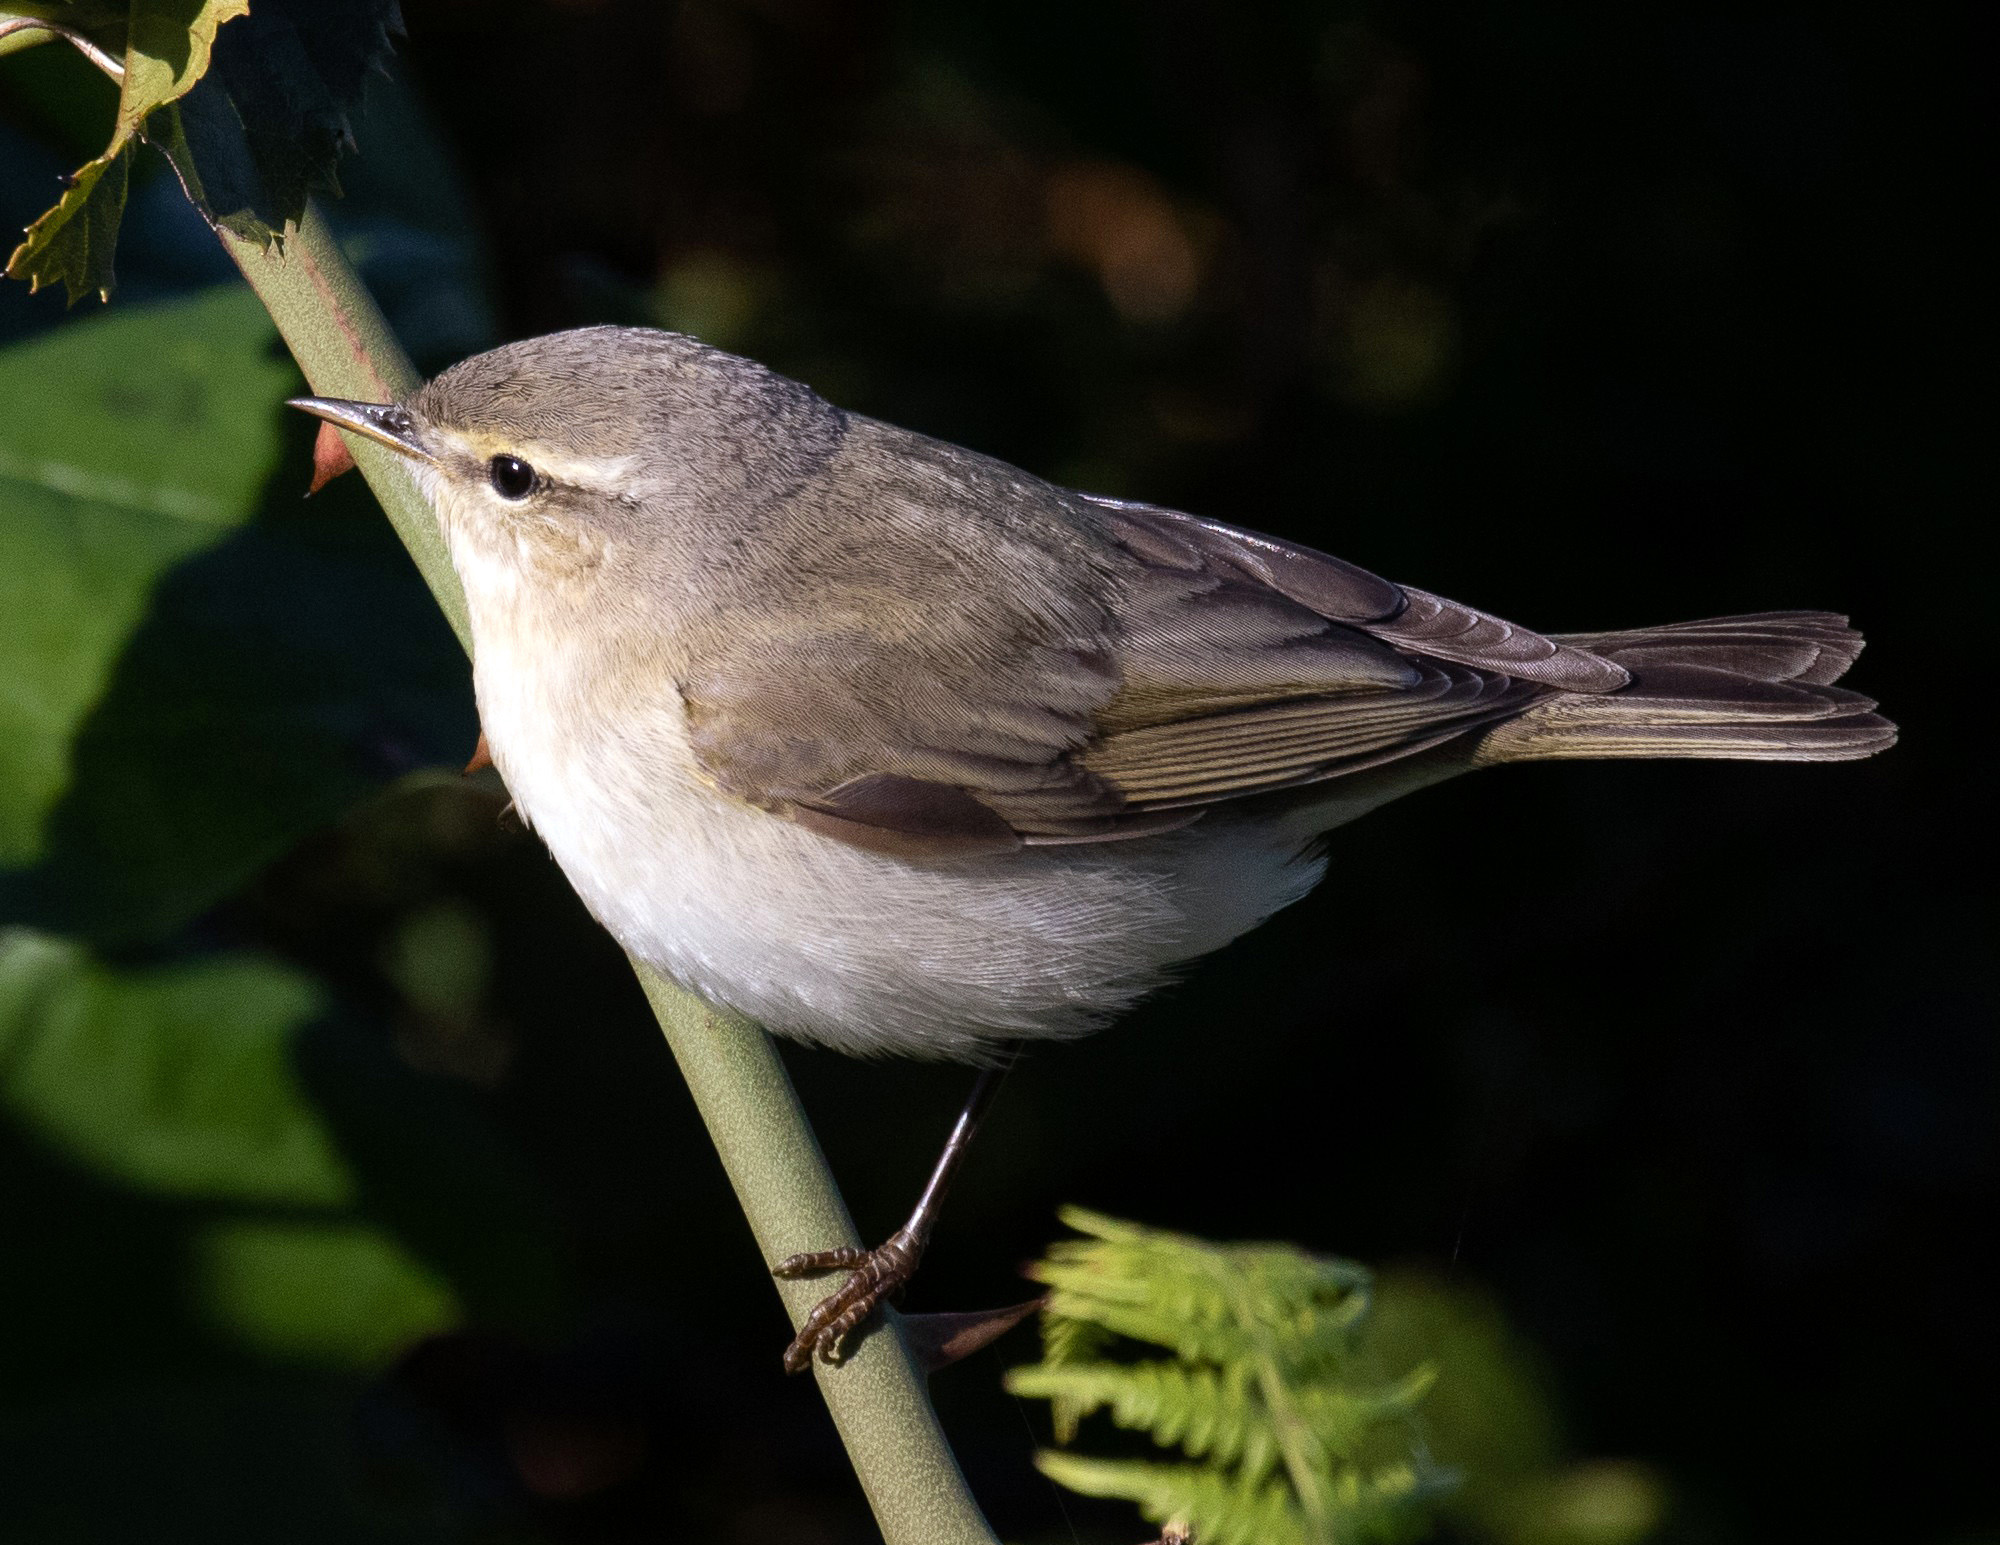
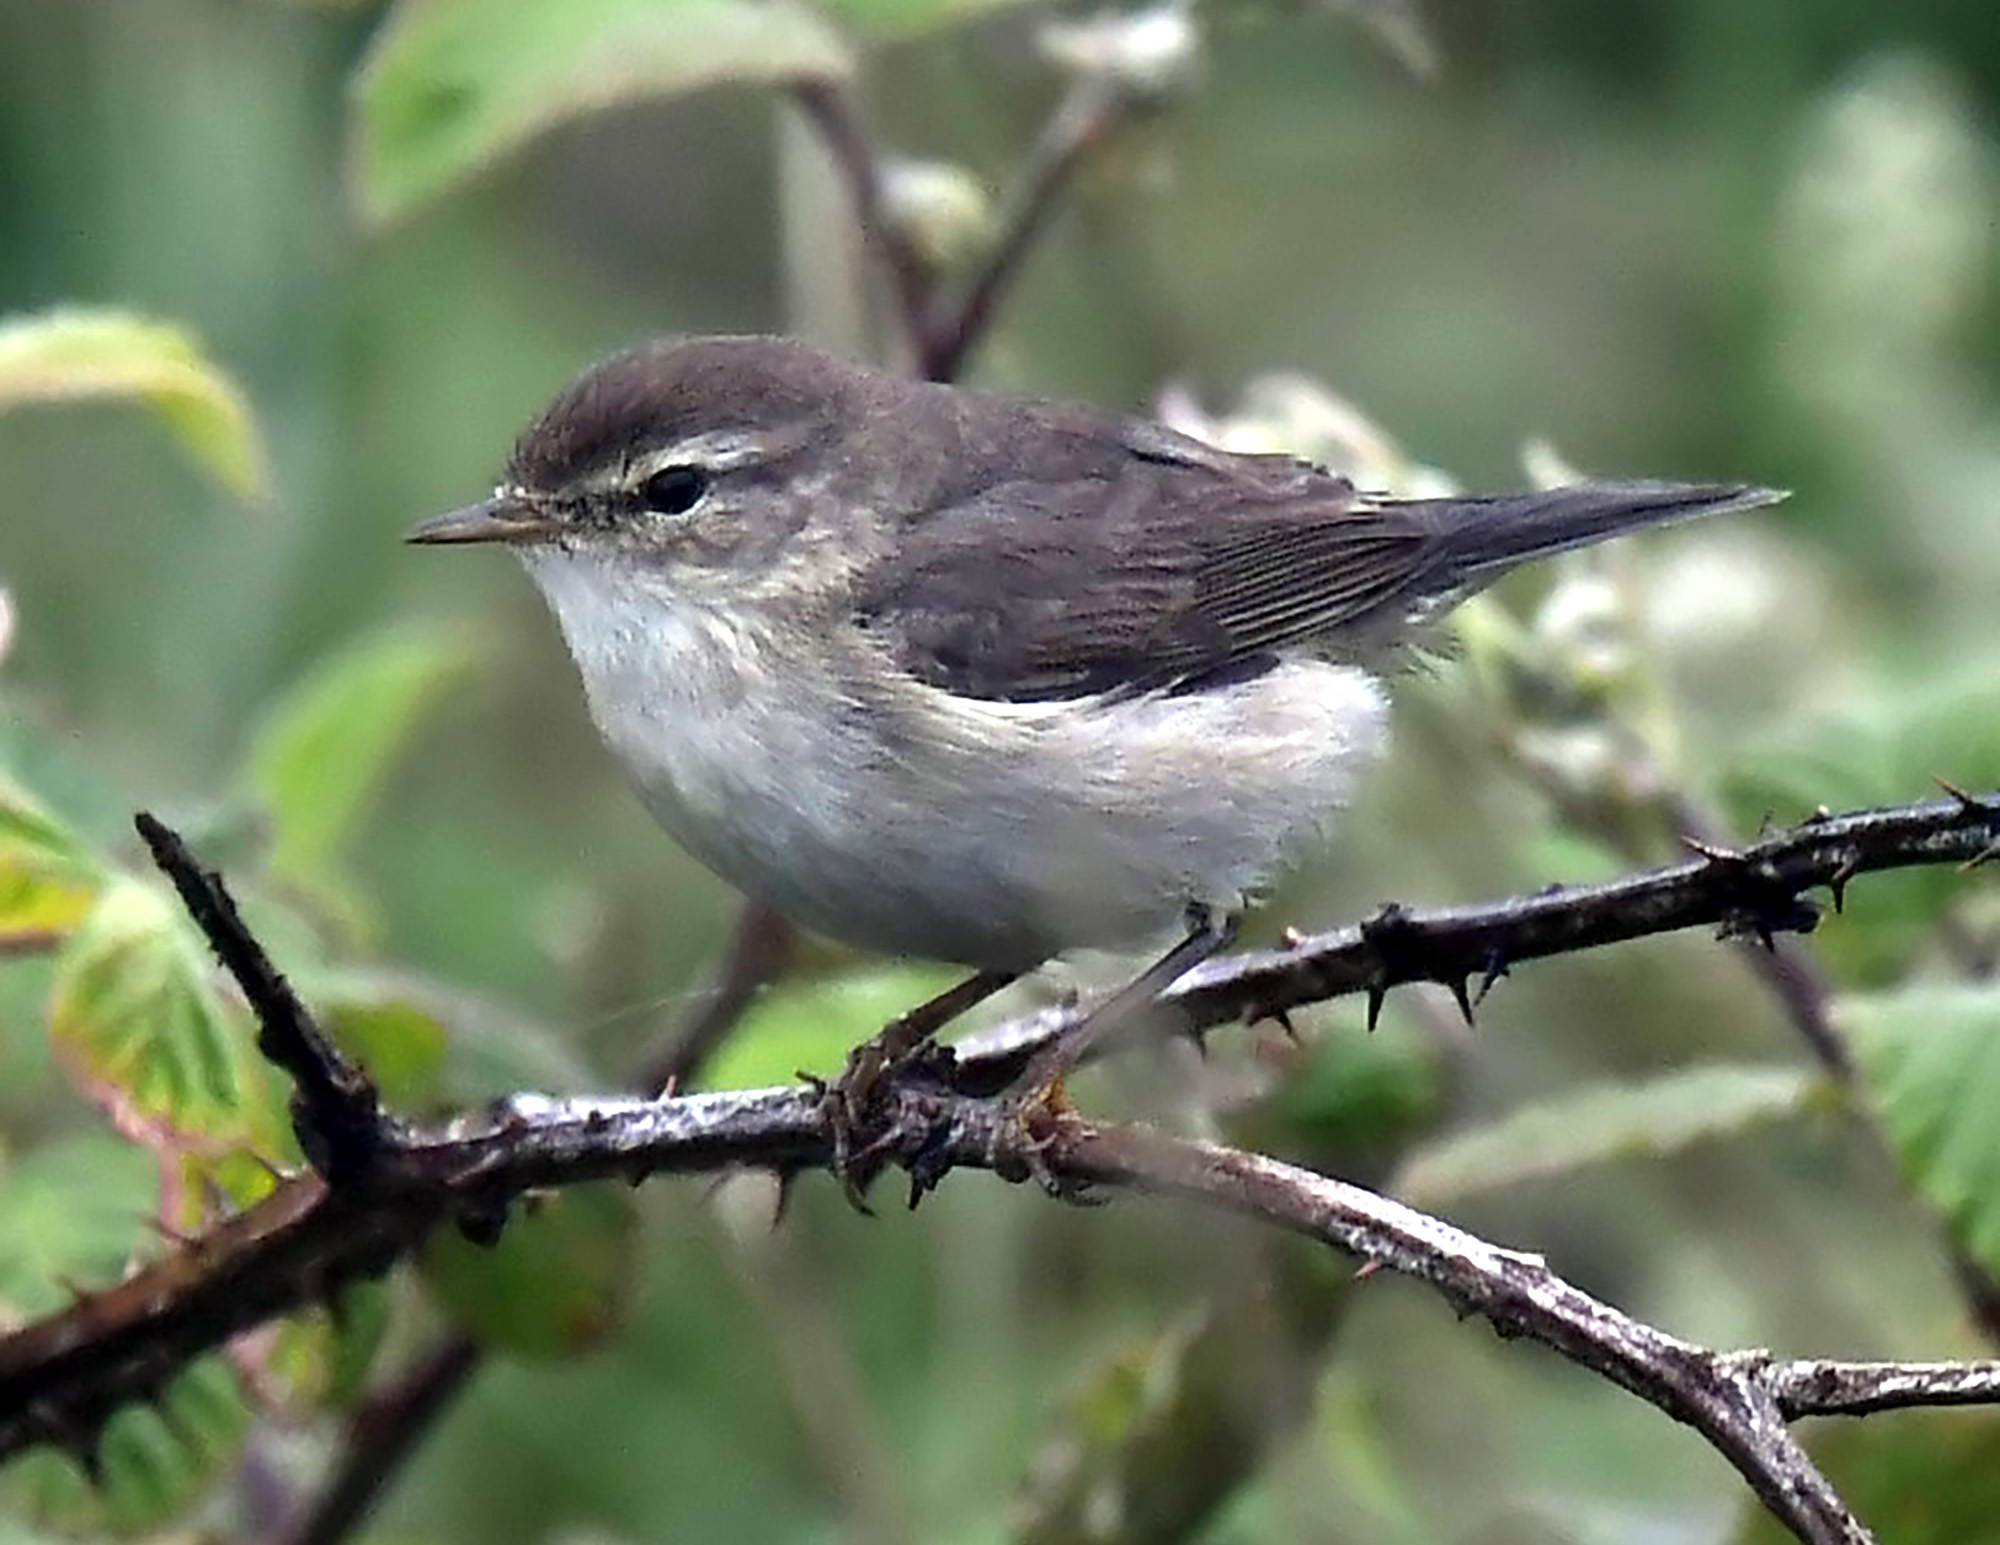
Le phénotype P2 correspond à des Pouillots fitis très ternes, quasiment sans coloration verte ou jaune, mais dont les pattes ne sont ni noirâtres ni sombres. Ce sont ces individus (avec les rares oiseaux de type P4) que les observateurs européens rapportent souvent en tant que «type acredula».
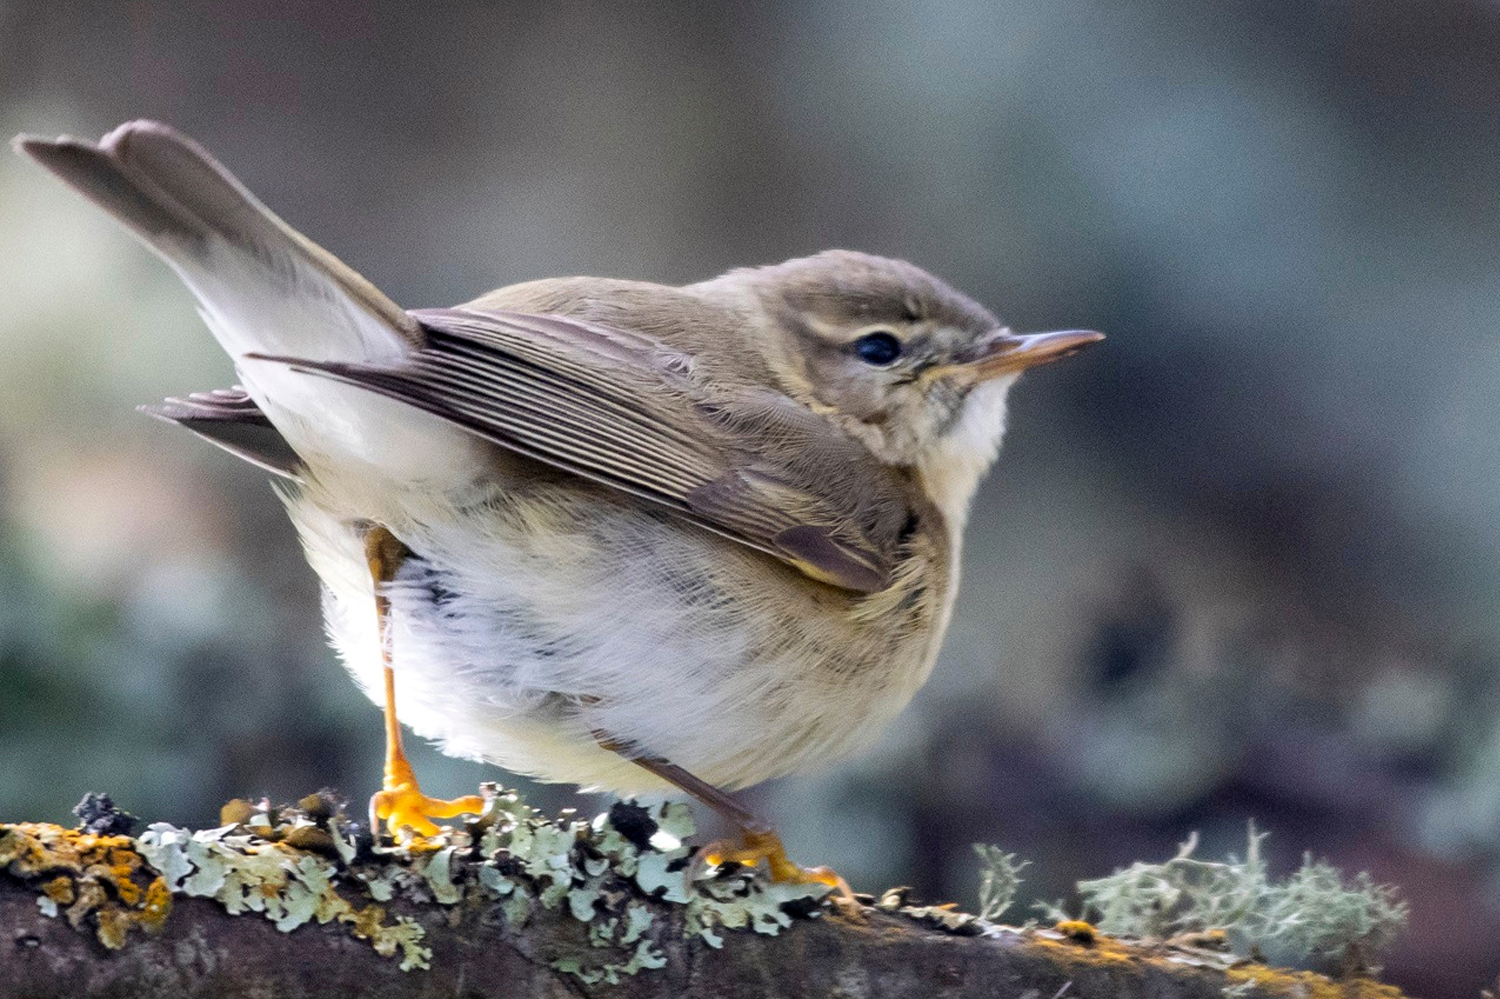
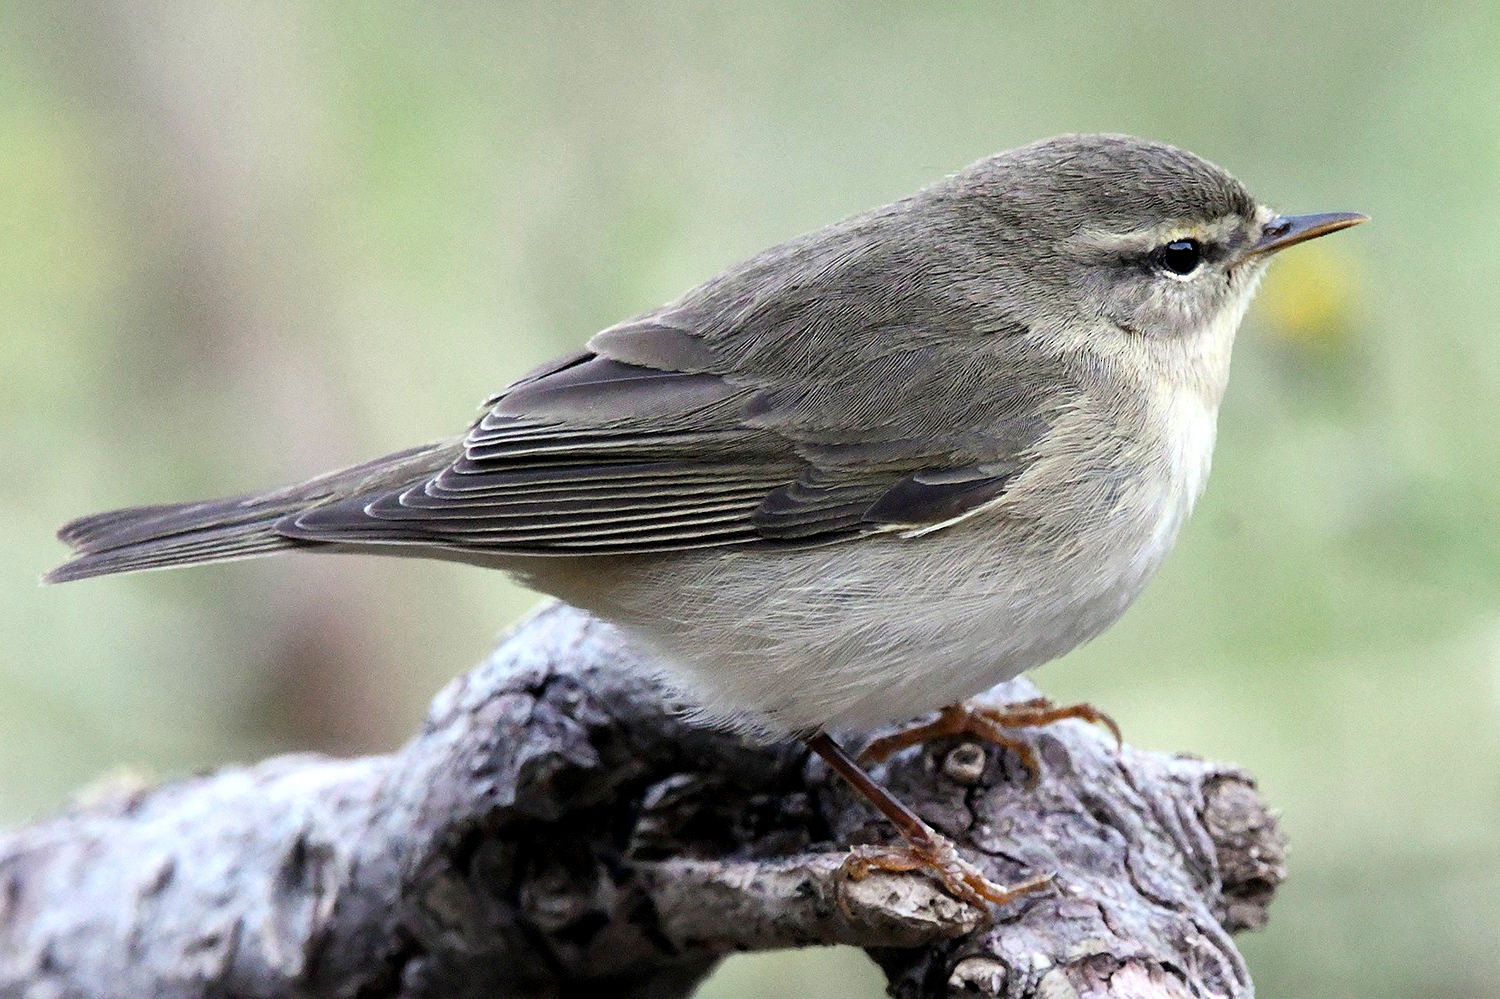
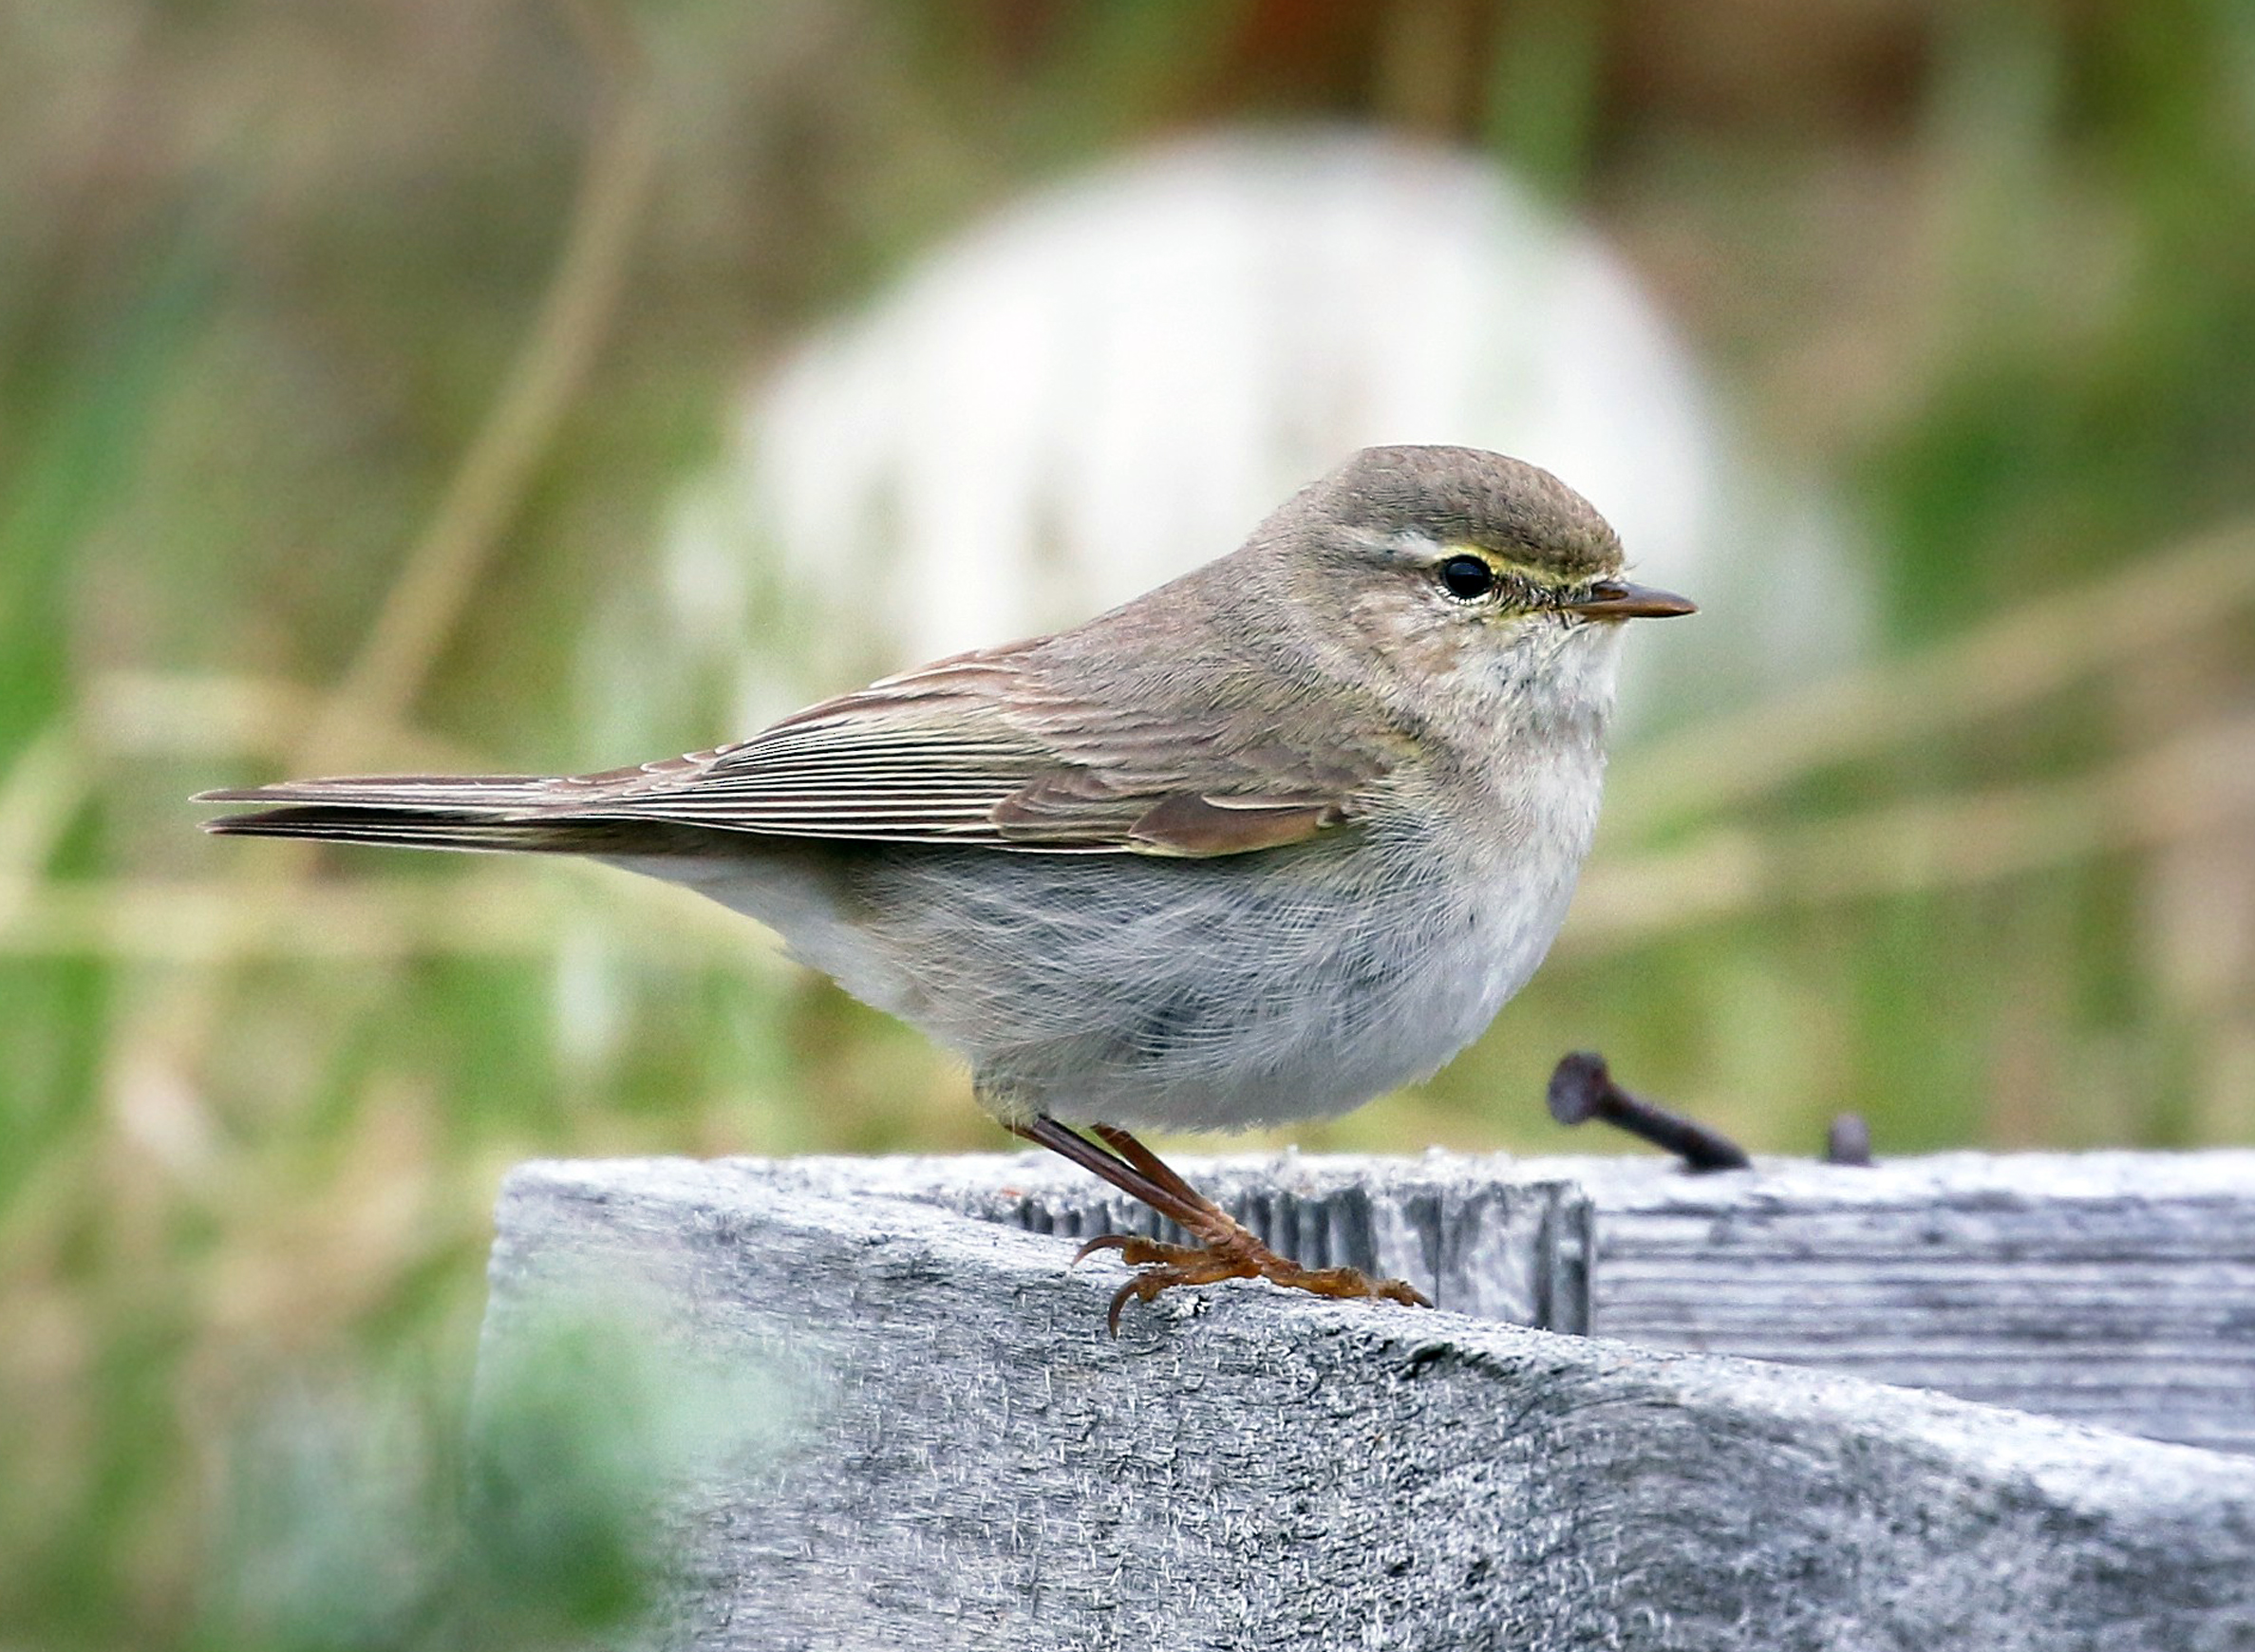
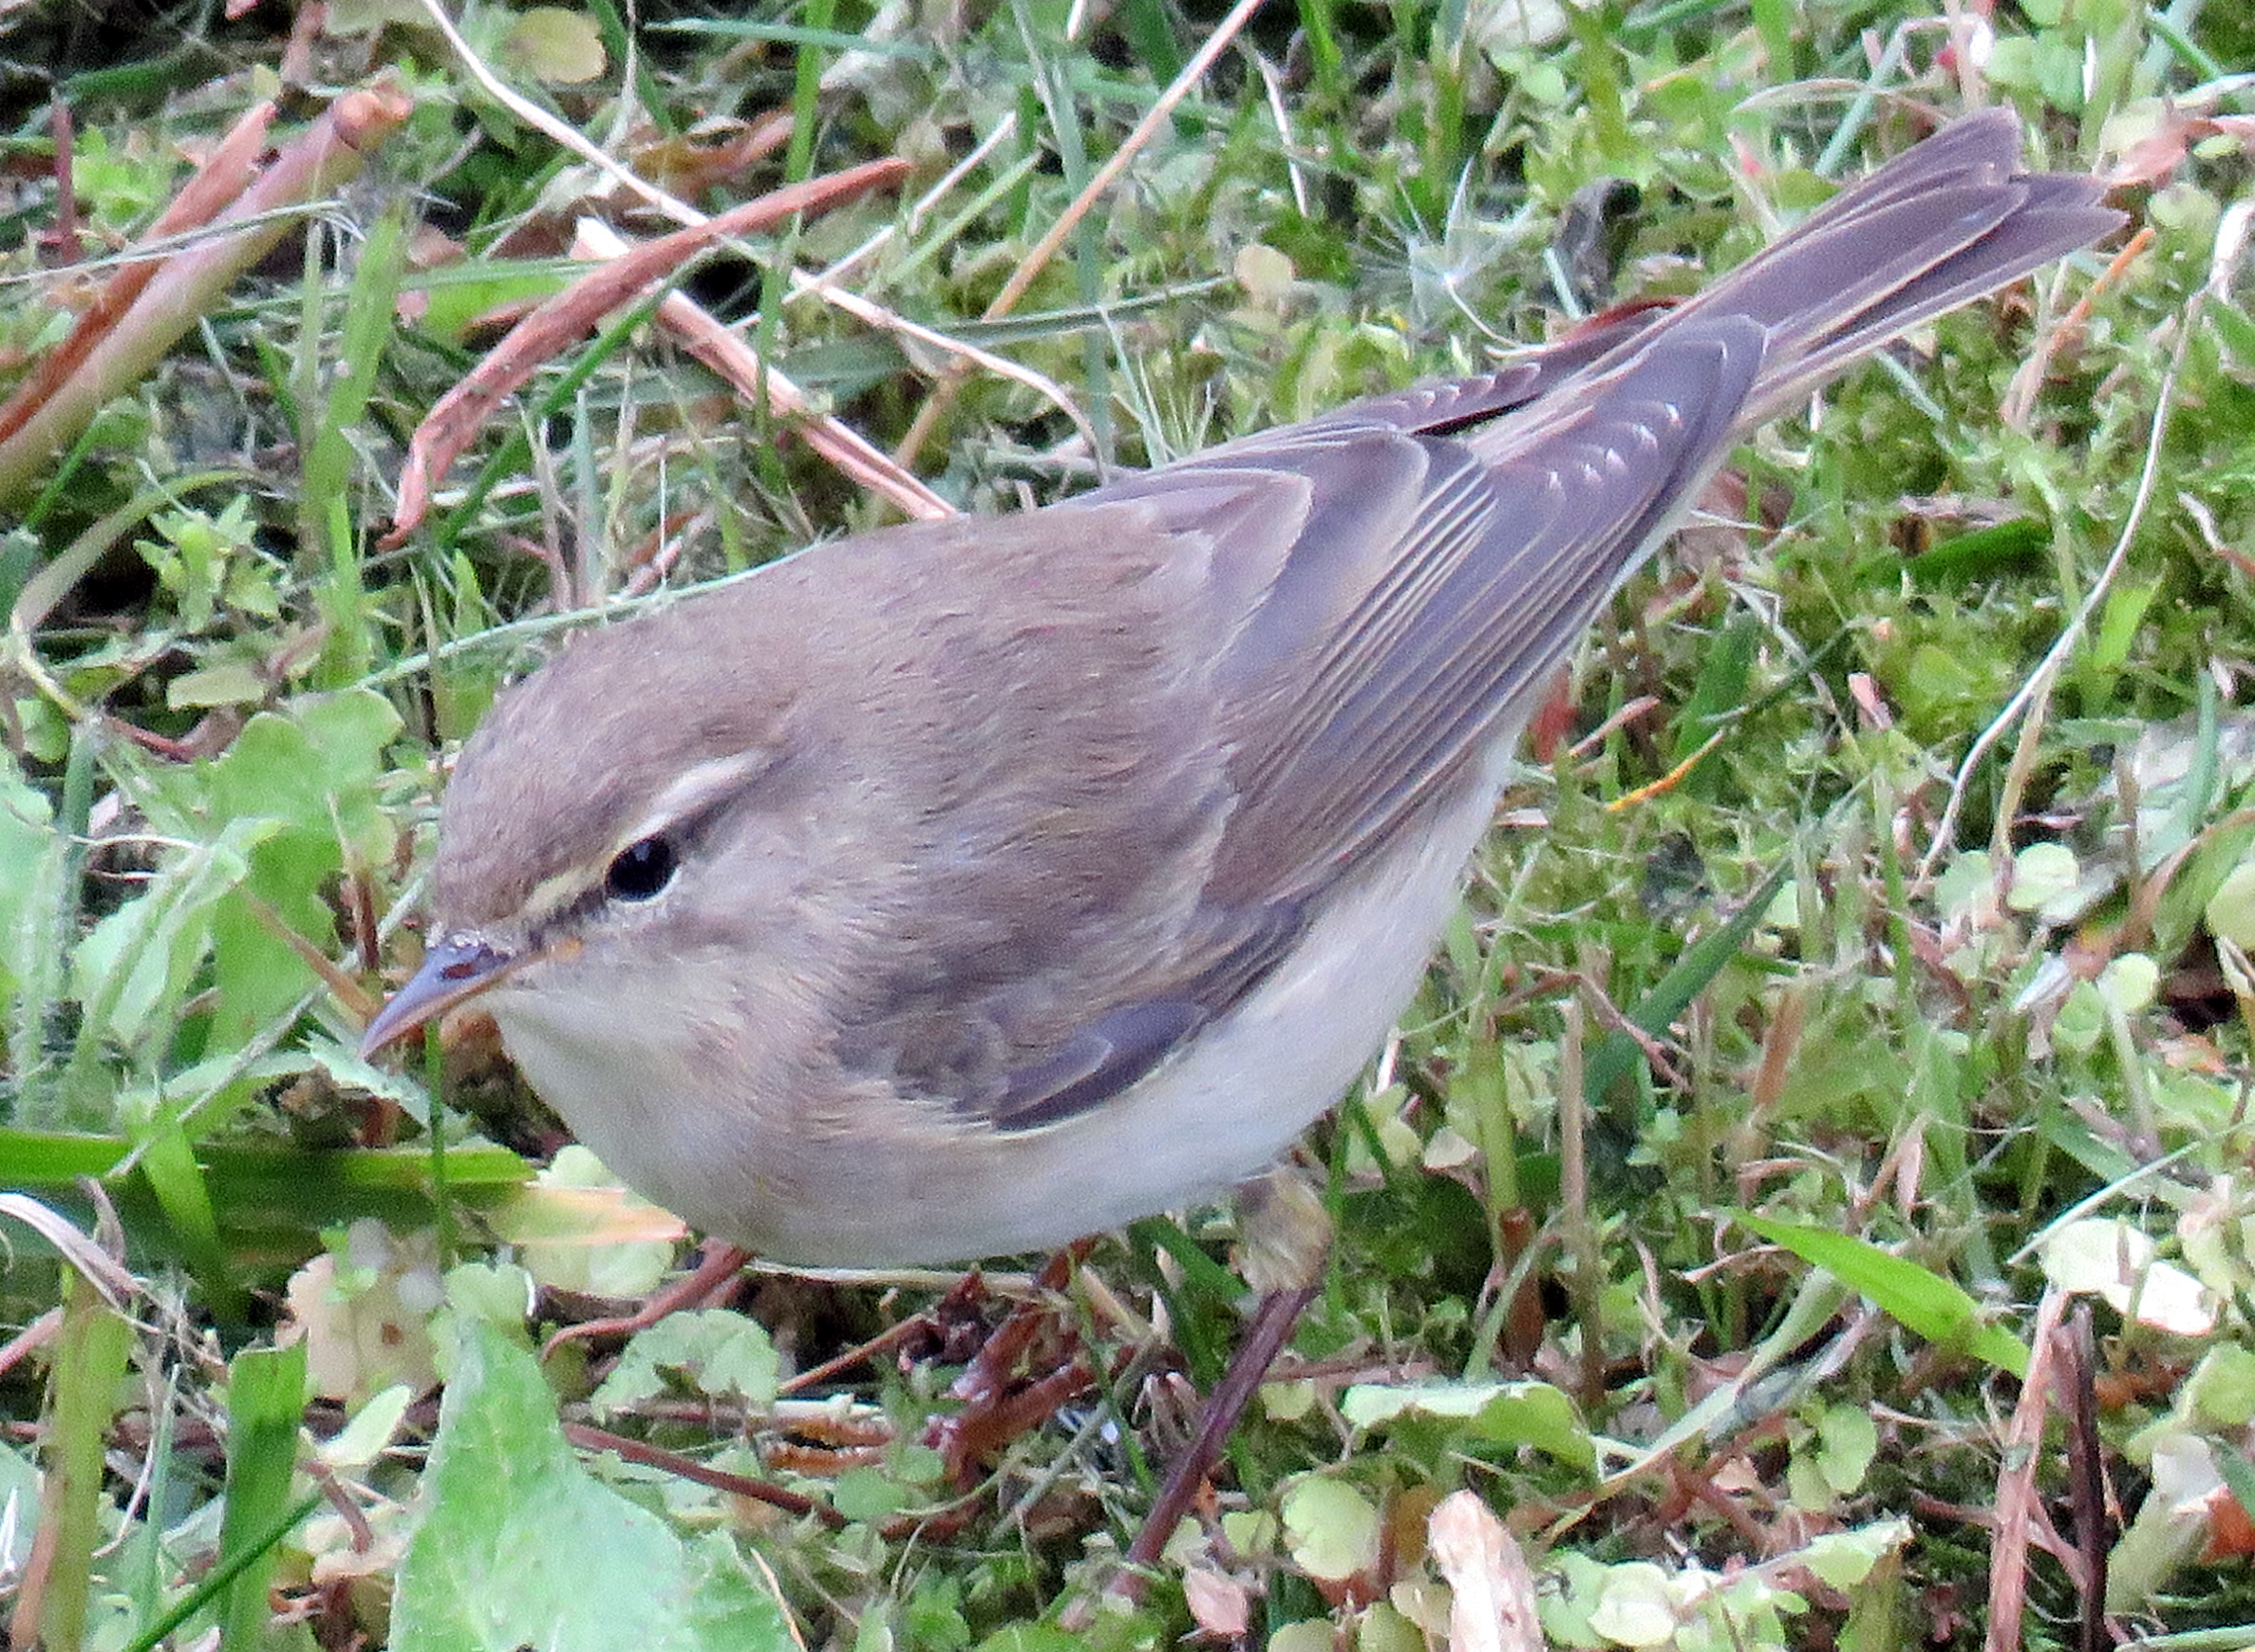
III-4. Intermédiaires colorés à pattes sombres (P3)
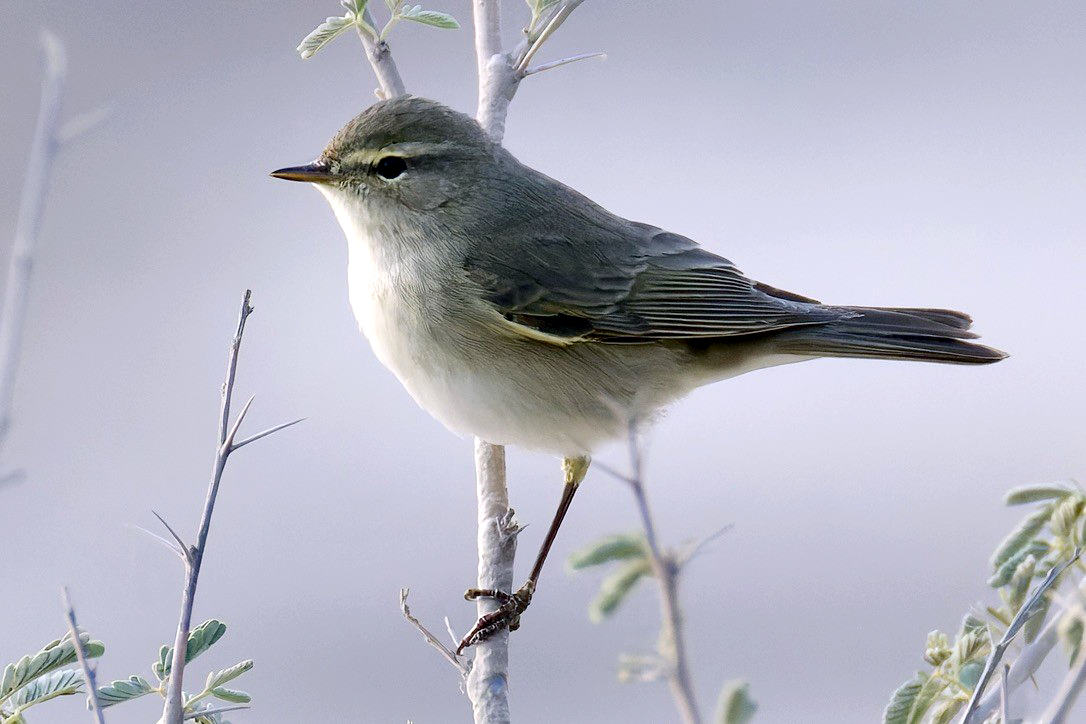
Le phénotype P3 se rapporte à des oiseaux colorés et contrastés, certains aussi jaunes que trochilus, mais dont les pattes sont sombres, parfois noirâtres.


III-5. Oiseaux extrêmement sombres
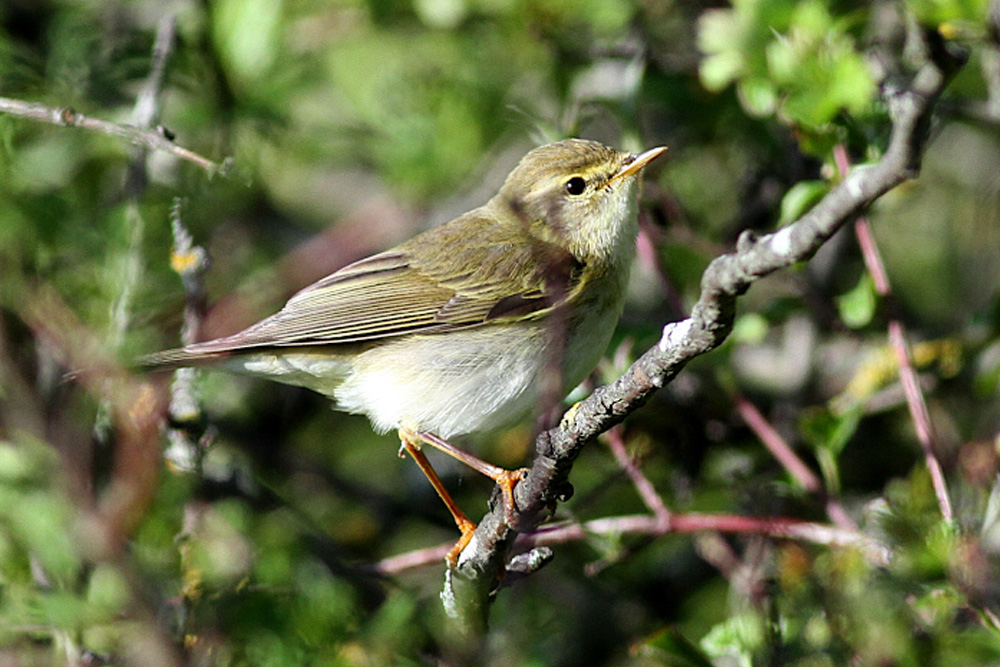
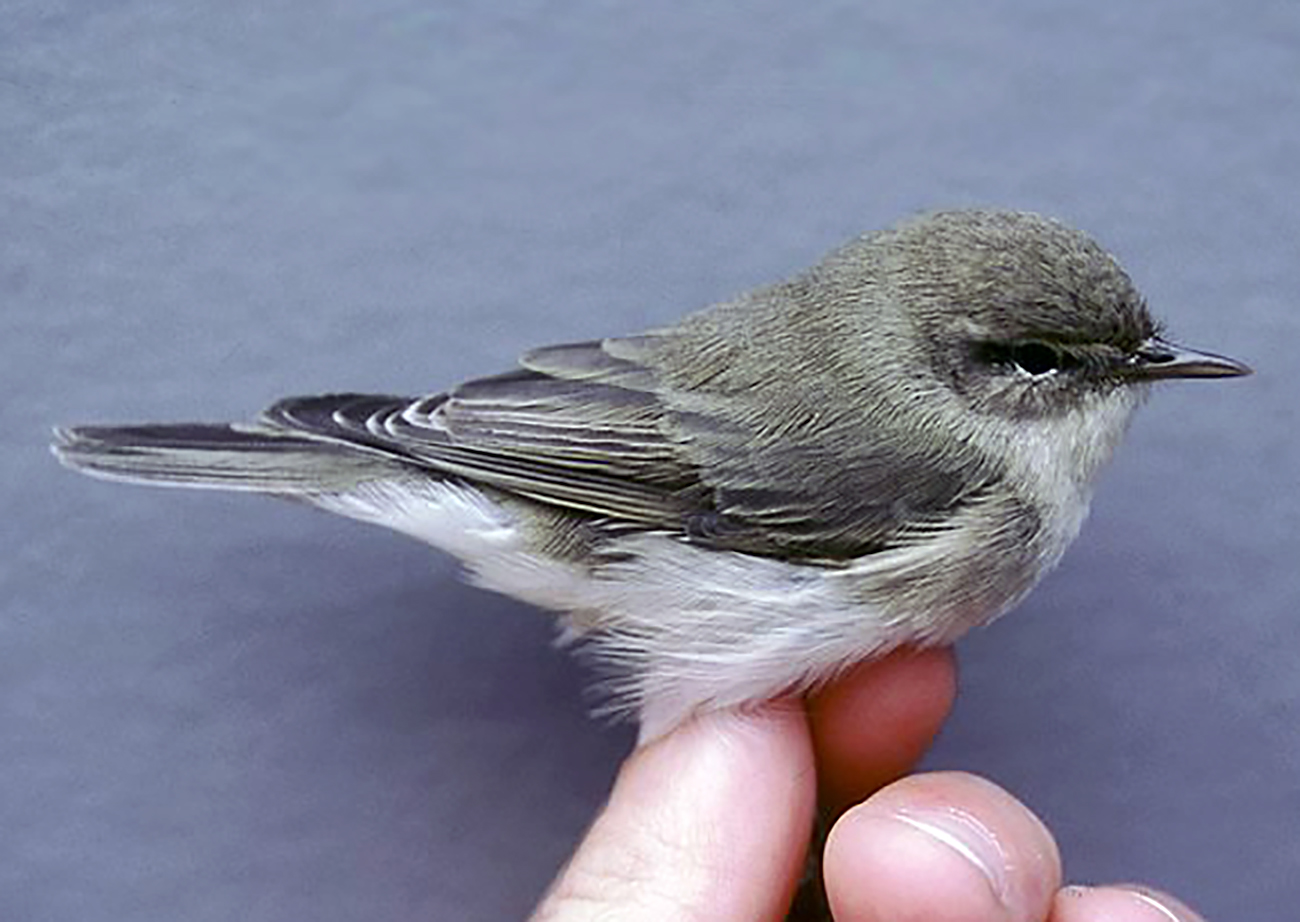
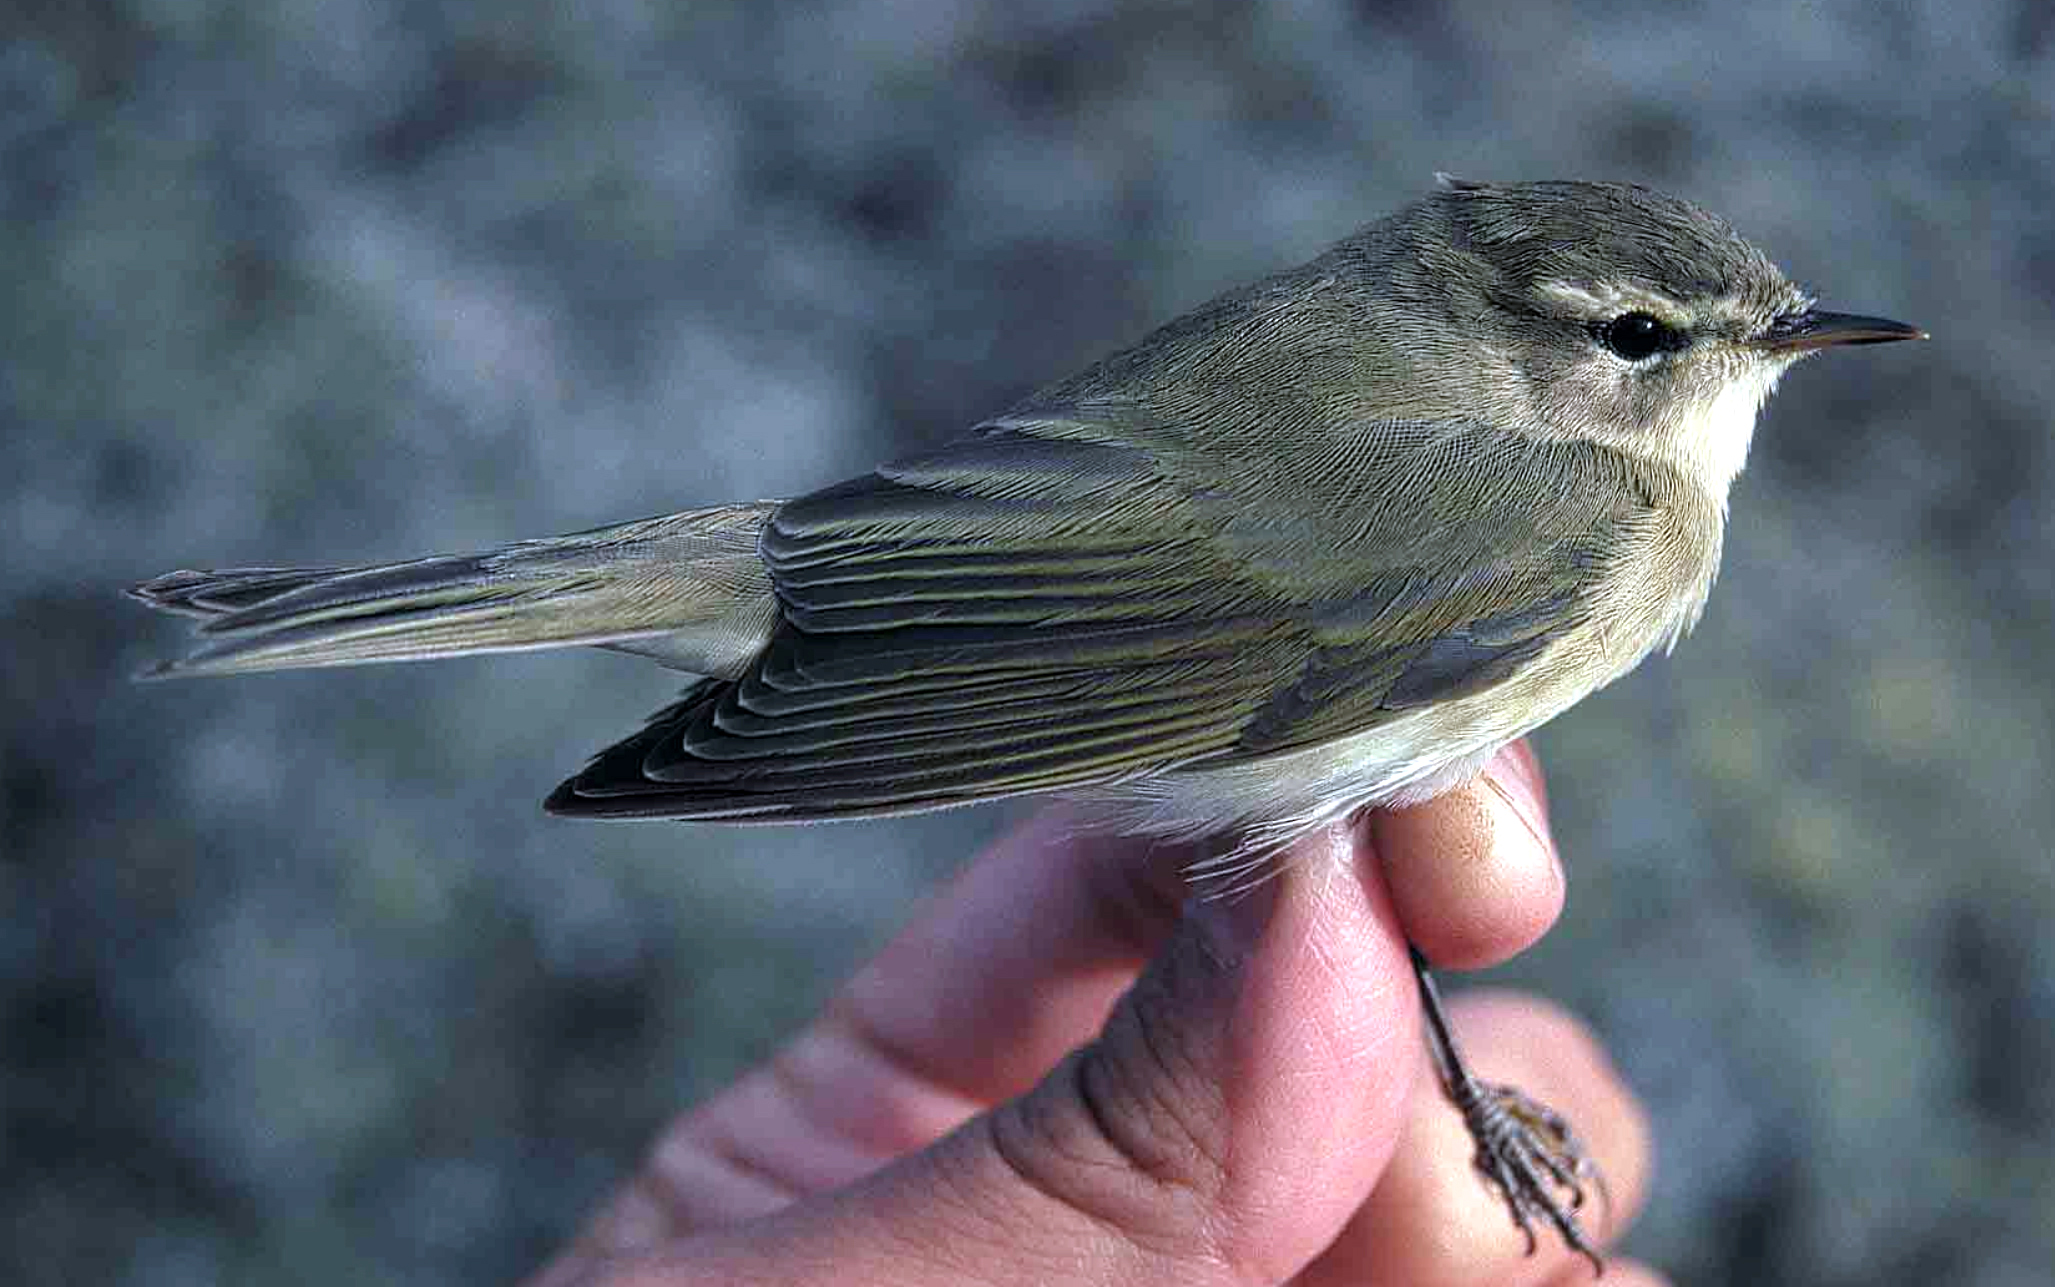
Enfin, il arrive de rencontrer des Pouillots fitis au phénotype extrême, semblables à P4, mais encore plus sombres. Le magazine Dutch Birding avait fait un quizz en 2001 au sujet d’un piège ornithologique, montrant un Pouillot fitis acredula ou yakutensis (photo ci-dessous) que les lecteurs avaient, pour beaucoup, identifié comme un Pouillot de Sibérie Phylloscopus collybita tristis. Les auteurs indiquaient à l’époque que, en dépit de la coloration de son plumage et de la couleur de ses pattes, ils considéraient cet oiseau comme appartenant à la sous-espèce acredula et qu’ils s’attendaient à ce qu’un yakutensis soit encore plus gris et plus terne que cet individu (Kok & van Duivendijk 2001).
IV – Quels phénotypes sont observés en France ?
La sous-espèce acredula est parfois rapportée en France, dès lors qu’un Pouillot fitis d’apparence très terne est observé. Sur la base de données Faune France, 250625 saisies de Pouillot fitis étaient enregistrées fin novembre 2025, parmi lesquelles 99 seulement faisaient état de la sous-espèce acredula (0,04%). Au cours de la période 2016-2025, hormis en 2018 et 2025 (21 données), la moyenne est de 3,8 mentions par an, sans prédominance d’une région en particulier.
Le statut de la sous-espèce yakutensis est inconnu, bien que celle-ci ait été évoquée sur Faune-France à deux reprises : un oiseau terne aux pattes noires, mais aux mensurations un peu basses pour cette sous-espèce le 2 octobre 2017 dans le Var, au marais des Estagnets sur la commune de Hyères (A. Audevard) et une citation non documentée le 17 septembre 2006 dans le Jura à Desnes (M. Giroud). Une autre source (Beauvallet et al. 2019) rapporte la capture de deux oiseaux «présentant les caractères de la sous-espèceyakutensis» le 24 avril 2009 et le 8 mai 2011 sur l’île de Porquerolles (Var), mais nous ne disposons pas de clichés de ces individus.
IV-1. Matériel et méthode
Les photographies de Pouillots fitis figurant sur deux plateformes de partage d’observations (eBird et Faune France) ont été examinées afin de les classer selon les phénotypes définis précédemment (P1 à P4). L’objectif était d’évaluer, comparativement à la France, la proportion de chaque phénotype dans les zones-clés de la migration : à l’extrême ouest en Espagne, à l’extrême est en Asie, et dans une zone mixte en Israël. Au total, les clichés de 8881 Pouillots fitis ont été analysés : 3547 pour la France (329 sur eBird, et 3218 sur Faune France), 3042 pour l’Espagne, 484 pour Israël et 1808 pour l’Asie.
Le tri des photos a été fait en combinant deux critères, la coloration du plumage et la couleur des pattes, définissant les catégories suivantes : P1 (plumage coloré et pattes pâles), P2 (plumage terne et pattes pâles), P3 (plumage coloré et pattes noirâtres), P4 (plumage terne et pattes noirâtres), n/a (oiseau inclassable). Les individus ne pouvant pas être correctement analysés (photo floue, erreur d’identification, pattes non visibles, photo à contre-jour ou surexposée, etc.) ont été exclus des résultats, ce qui représente environ 1436 photos (16% de l’échantillon étudié). De plus, lorsqu’il y avait un doute sur le fait que les pattes étaient sombres, par exemple en raison de la présence de zones pâles, les oiseaux ont été classés en catégorie P1 ou P2 : ainsi, les catégories P3 et P4 ne sont constituées que d’oiseaux aux pattes réellement noirâtres. Les résultats suivants reposent donc sur un échantillon de 7445 photos, 2835 pour la France, 2556 pour l’Espagne, 425 pour Israël et 1629 pour l’Asie.
IV-2. Résultats
Le tableau 1 et la figure 2 montrent la répartition des différents phénotypes identifiés en fonction des zones géographiques considérées. On constate que, toutes régions confondues, le phénotype P1 est largement le plus abondant, puisqu’il concerne 74% des individus photographiés. Les phénotypes P2 et P3 sont assez peu représentés, avec respectivement 9 et 15% des oiseaux, et le phénotype P4 est de loin le plus rare, 2% seulement des Pouillots fitis examinés combinant un plumage terne et des pattes noirâtres.
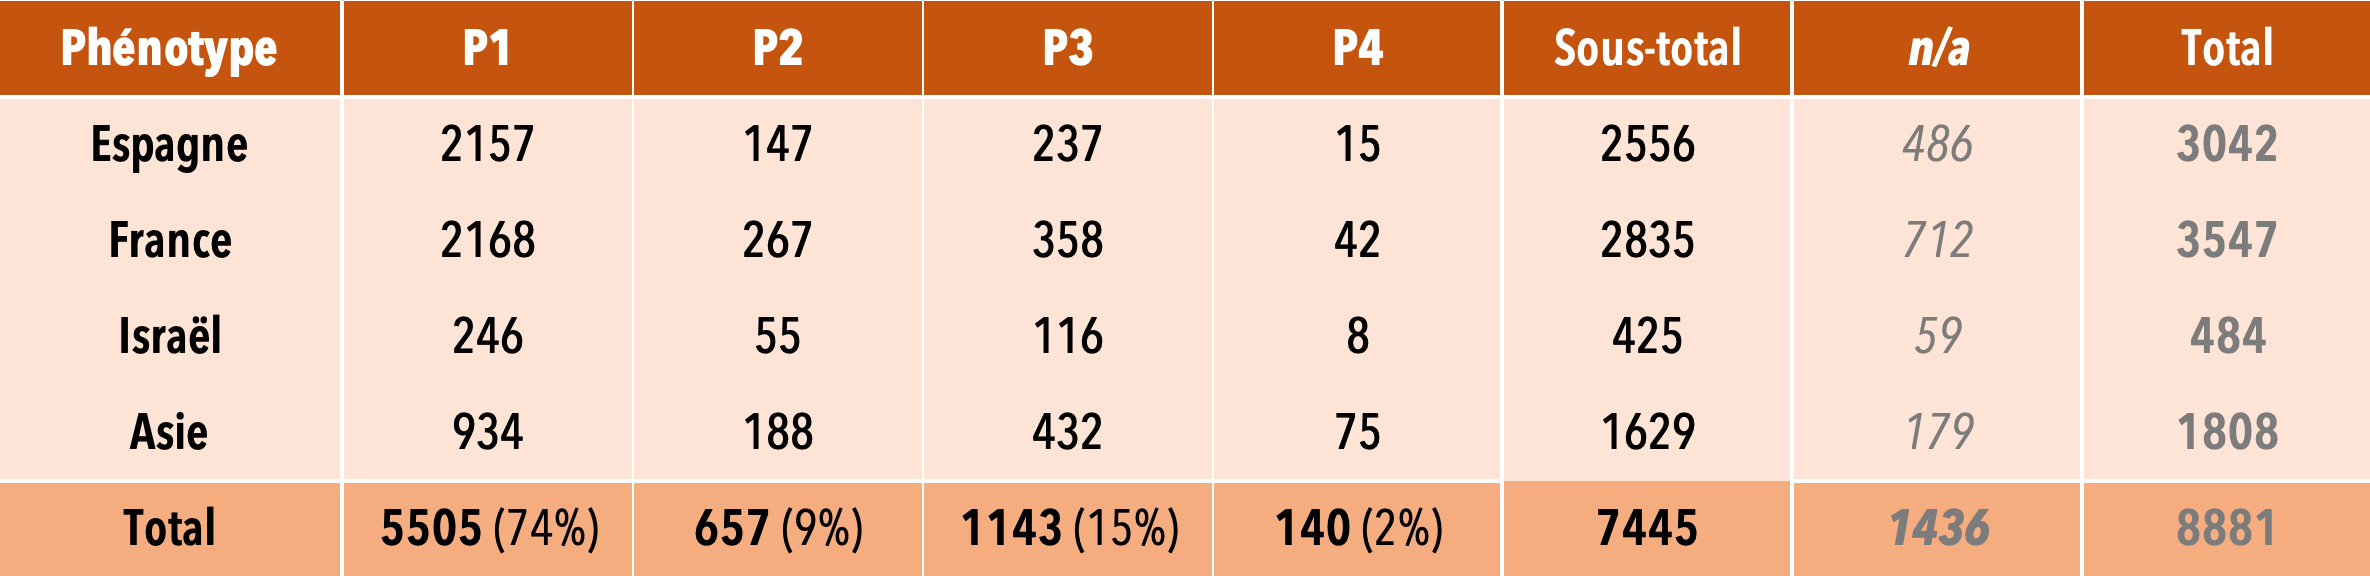
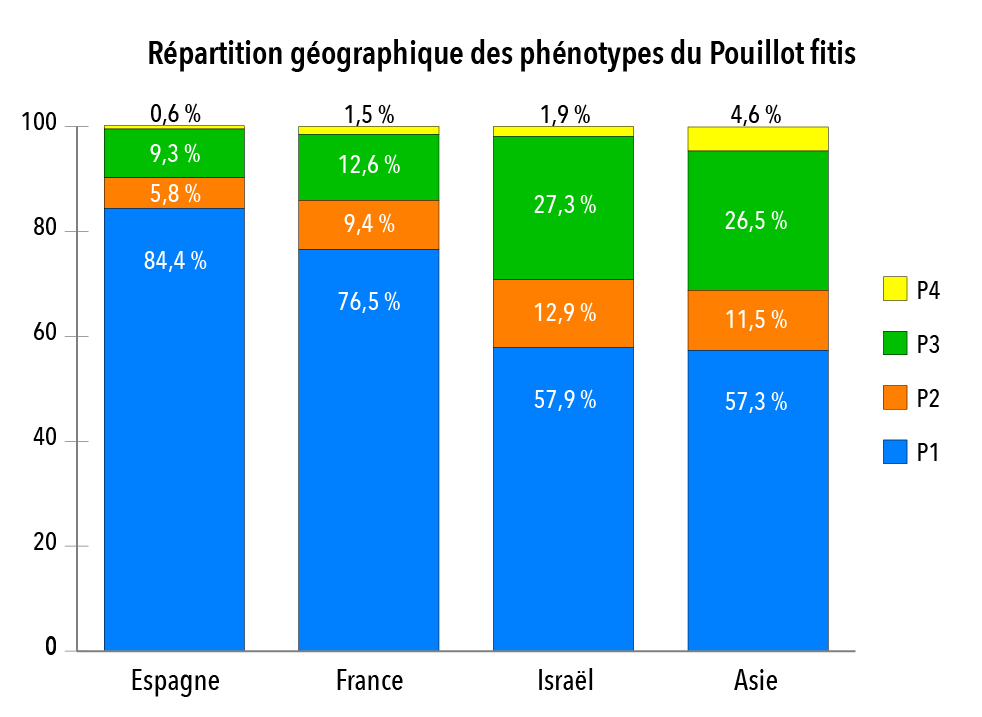
Il apparaît également que la répartition des phénotypes diffère sensiblement d’une région à l’autre, P1 étant davantage représenté à l’ouest et P4 à l’est, ce qui est en accord avec la distribution des différentes sous-espèces. De même, sans surprise, on trouve une proportion croissante des phénotypes P2, P3 et P4 à mesure que l’on va vers l’est, la somme de ces trois phénotypes représentant 16% des cas en Espagne, 24% en France, 42% en Israël et 43% en Asie.
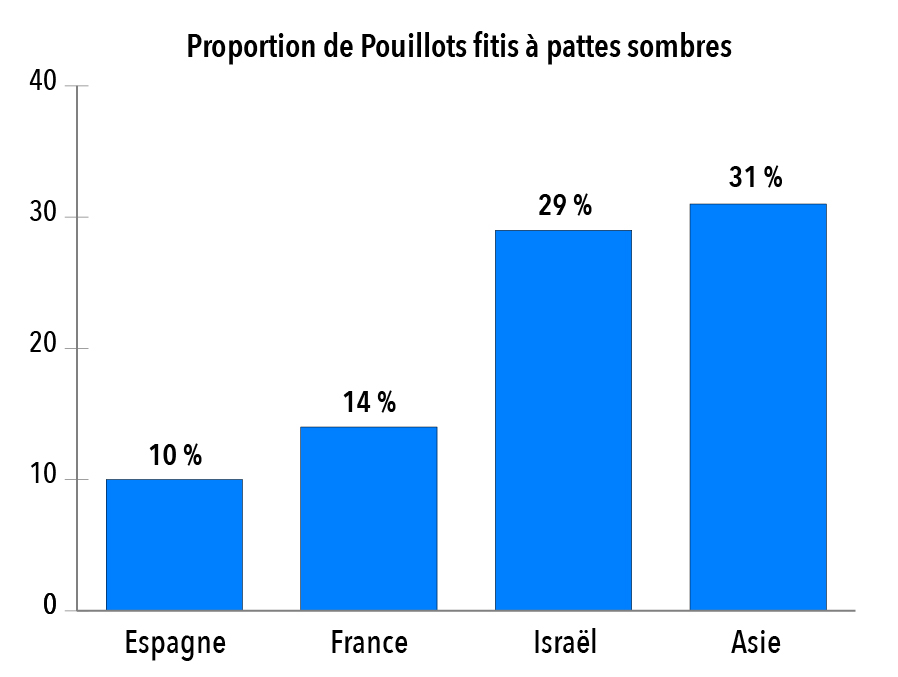
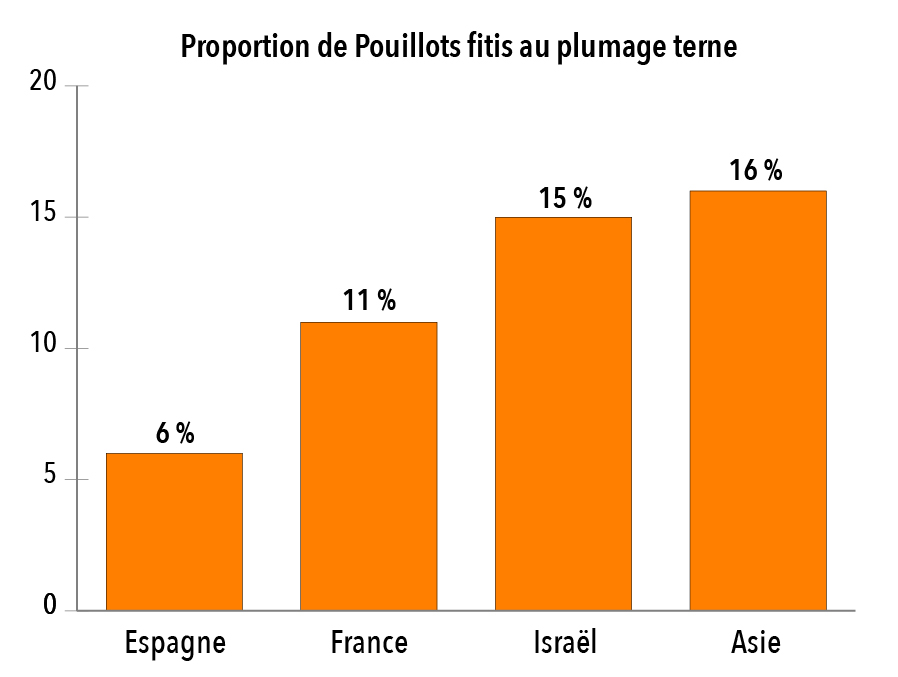
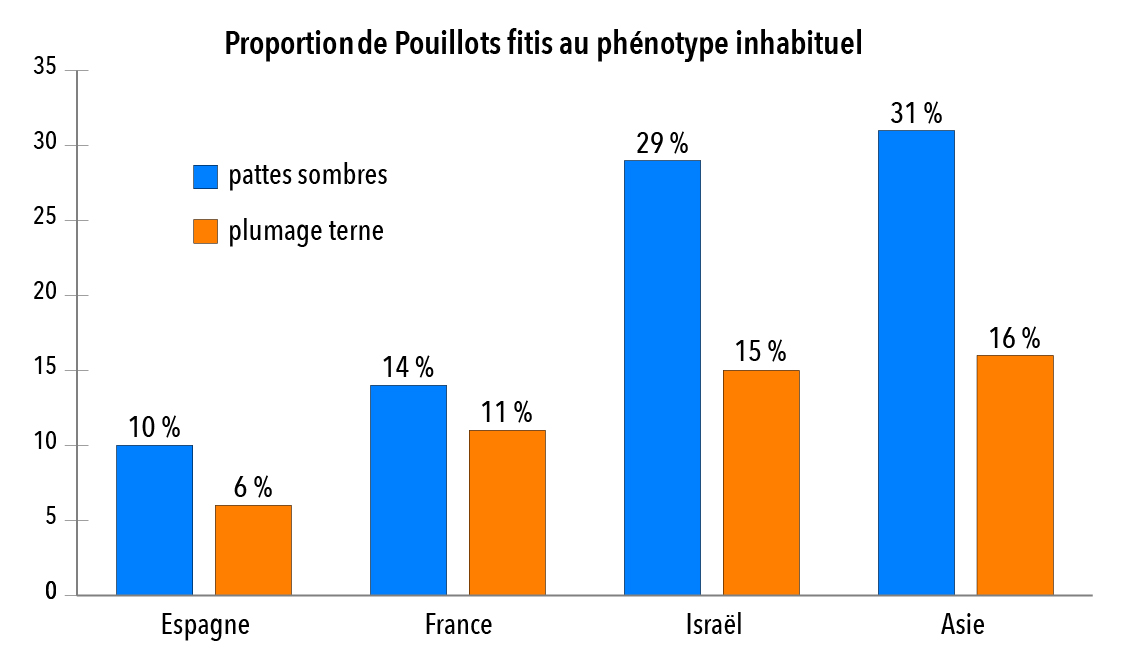
L’analyse de la coloration des pattes seule (fig. 3) montre une évolution plutôt prévisible, avec de plus en plus d’oiseaux à pattes noirâtres en allant vers l’est (plus du double en Asie qu’en France), tandis que celle du plumage (fig. 4) traduit une variation moins marquée qu’attendue (à peine une fois et demie plus d’oiseaux ternes en Asie qu’en France). Et lorsque les deux critères sont représentés à la même échelle (fig. 5), cette différence est encore plus frappante.
V – Discussion
Cette rapide analyse comporte un certain nombre de biais méthodologiques :
• la catégorisation des oiseaux a été faite par une seule personne et certaines colorations des pattes (par exemple rouge sombre) pourraient être attribuées à une autre catégorie ;
• les couleurs ne sont pas toujours faciles à interpréter, selon l’éclairage du soleil, la perception de l’œil, la calibration de l’écran, etc. ;
• on ignore si l’échantillon de photos est représentatif de la réalité. L’espèce étant relativement commune, les observateurs peuvent avoir davantage tendance à rapporter (en photo) les oiseaux qui sortent de l’ordinaire. Par exemple, une donnée enregistrée le 10 avril 2025 en France mentionne l’observation de 30 Pouillots fitis et comporte une seule photo montrant un individu de phénotype P2 ; il est vraisemblable que la plupart des 29 autres oiseaux, sinon tous, aient été de type P1, et dans la mesure où ils n’ont pas été comptabilisés dans l’étude, cela tend à surestimer un phénotype moins classique ;
• l’analyse des photos a été faite sans distinguer les oiseaux vus en automne (juvéniles et adultes) de ceux photographiés au printemps (adultes). Toutefois, si ces derniers sont moins colorés que les oiseaux vus à l’automne, leurs pattes ne s’assombrissent pas pour autant. Le risque de surestimation ne concernerait donc que la proportion d’oiseaux de type 2, ce qui n’est toutefois pas le cas au vu des résultats obtenus ;
• il est possible que plusieurs photos concernant le même oiseau aient été comptabilisées comme des données différentes.
Cependant, on peut tirer une information importante de la répartition des sous-espèces, puisque, sauf s’agissant d’individus égarés, il n’y a en théorie aucun trochilus en Israël et en Asie, où les oiseaux de type P1 sont respectivement des acredula et des yakutensis, et il n’y a pas d’acredula ni de yakutensis en Espagne et en France. On peut donc en déduire que pour suspecter un Pouillot fitis nordique ou oriental, le critère de la pâleur du plumage semble moins pertinent que celui de la coloration sombre des pattes. En conséquence, la probabilité qu’un Pouillot fitis, coloré ou non, avec les pattes (très) noires soit un acredula ou un yakutensis plutôt qu’un trochilus est plus importante que celle d’un oiseau terne aux pattes pâles.
Notons qu’à la fin des années 1940, une étude visant à évaluer la couleur des pattes du Pouillot fitis en comparaison de celle du Pouillot véloce (Conder & Keighley 1950), qui était alors le seul critère de distinction entre ces espèces (en dehors de la voix), a montré que 7,8% des 426 Pouillots fitis capturés et examinés sur l’île de Skokholm (Pays de Galles) avaient les pattes ardoise foncé (7,5%) ou grises (0,3%). À noter que tous ces oiseaux avaient été capturés à l’automne (de juillet à septembre) et qu’aucun des individus capturés au printemps (avril-mai) n’avaient les pattes sombres. Il est intéressant de noter que ce pourcentage est proche des chiffres trouvés pour l’Espagne (10%) et la France (14%).
Deux exemples d’oiseaux au phénotype intéressant
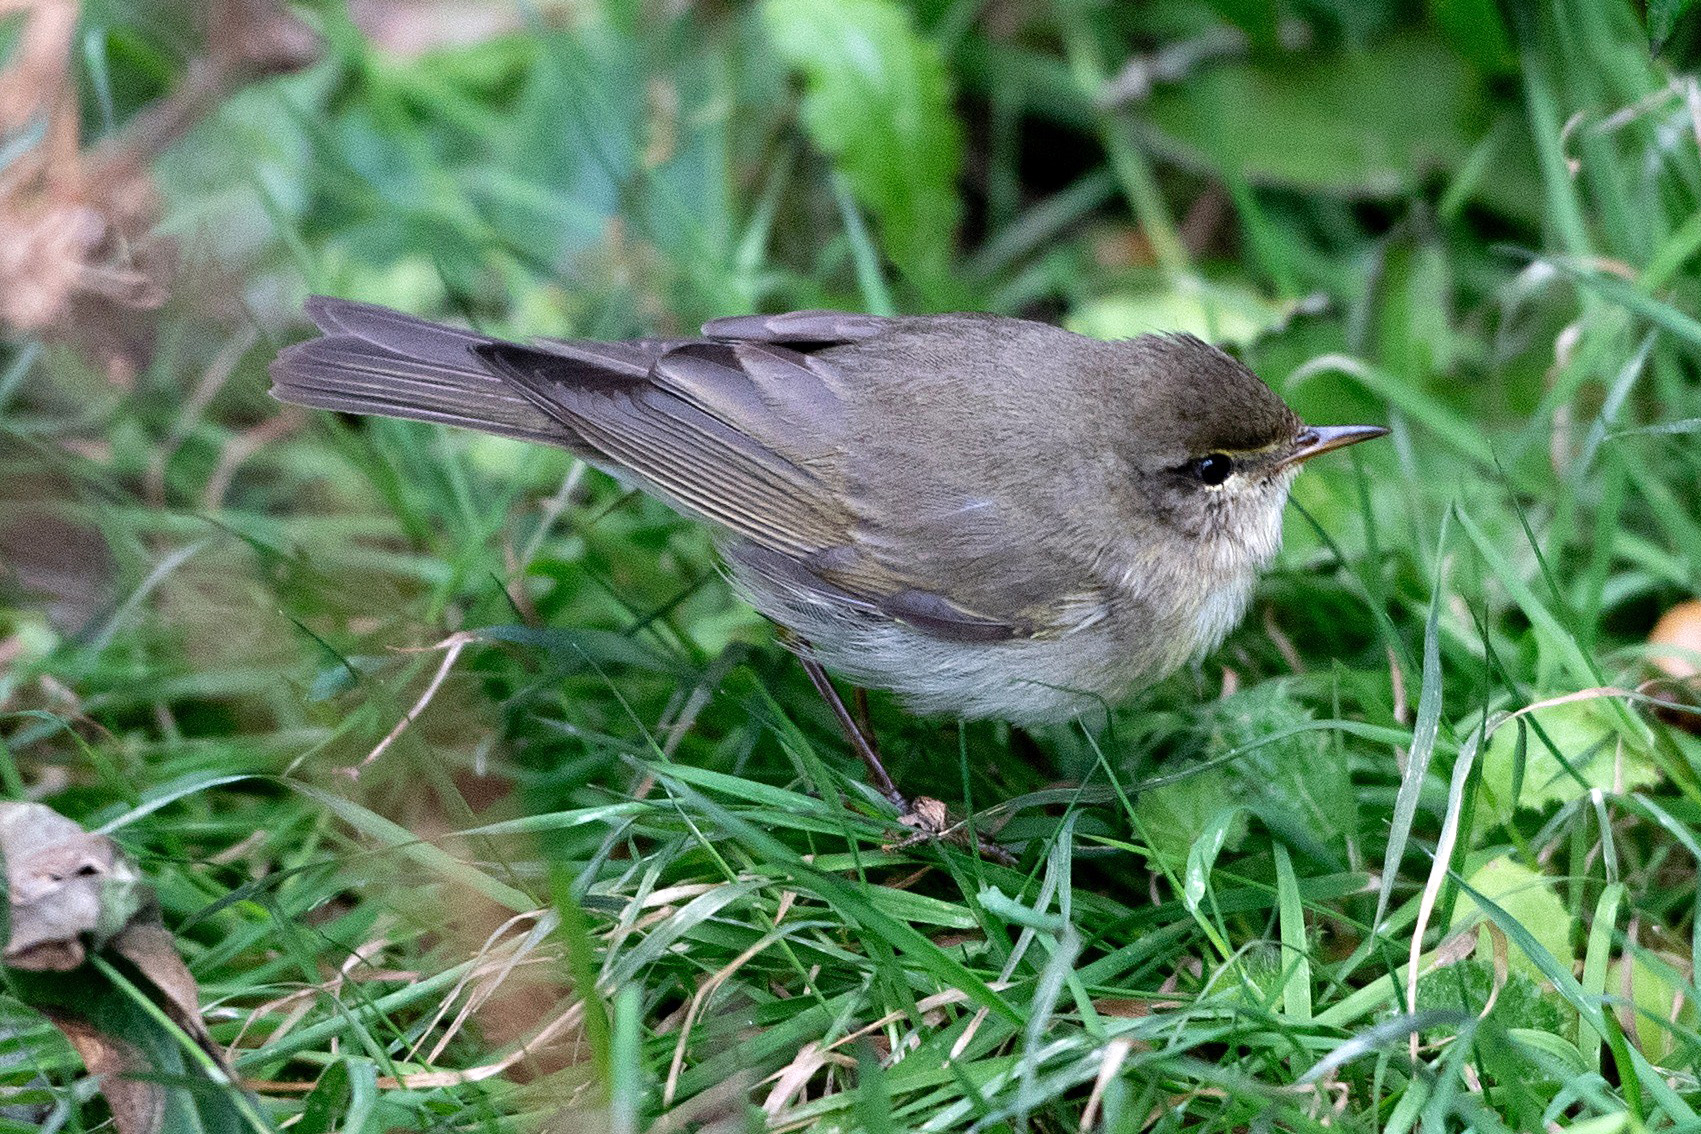
• Le 21 octobre 2025, près du phare de l’île de Sein (Finistère), Matthieu Canévet a observé un pouillot dont l’aspect très terne et les pattes noires l’ont d’abord orienté vers un Pouillot de Sibérie Phylloscopus collybita tristis. L’oiseau se tenait dans un trou de mur à l’abri du vent et était manifestement épuisé, puisqu’il se laissait approcher jusqu’à moins d’un mètre. Son plumage présentait une teinte très froide, terne, gris et blanc, et il présentait un sourcil blanc tirant sur le jaune grisâtre à l’avant de l’œil. Sa projection primaire était longue (environ 100% de la longueur des tertiaires). Ses parties supérieures étaient gris-brun, avec une coloration de base tirant sur l’olive grisâtre. Ses pattes étaient noires avec une teinte bordeaux en couleur secondaire (à l’analyse de colorimétrie). Il est finalement identifié comme un Pouillot fitis, mais avec un aspect particulièrement inhabituel. Cette semaine-là (semaine 43), il y avait un contexte météorologique de vents d’est répétés, avec des arrivées d’oiseaux sibériens (par exemple un afflux de Bruants masqués Emberiza spodocephala et de Pouillots de Pallas Phylloscopus proregulus en Europe de l’Ouest).
La conjonction des trois critères (plumage particulièrement sombre, pattes d’un noir profond et projection primaire longue), qui se situent à l’extrême de la variation géographique de l’espèce, ainsi que le contexte météorologique sont des indices solides pour envisager que cet oiseau ait été un Pouillot fitis oriental P. t. yakutensis.
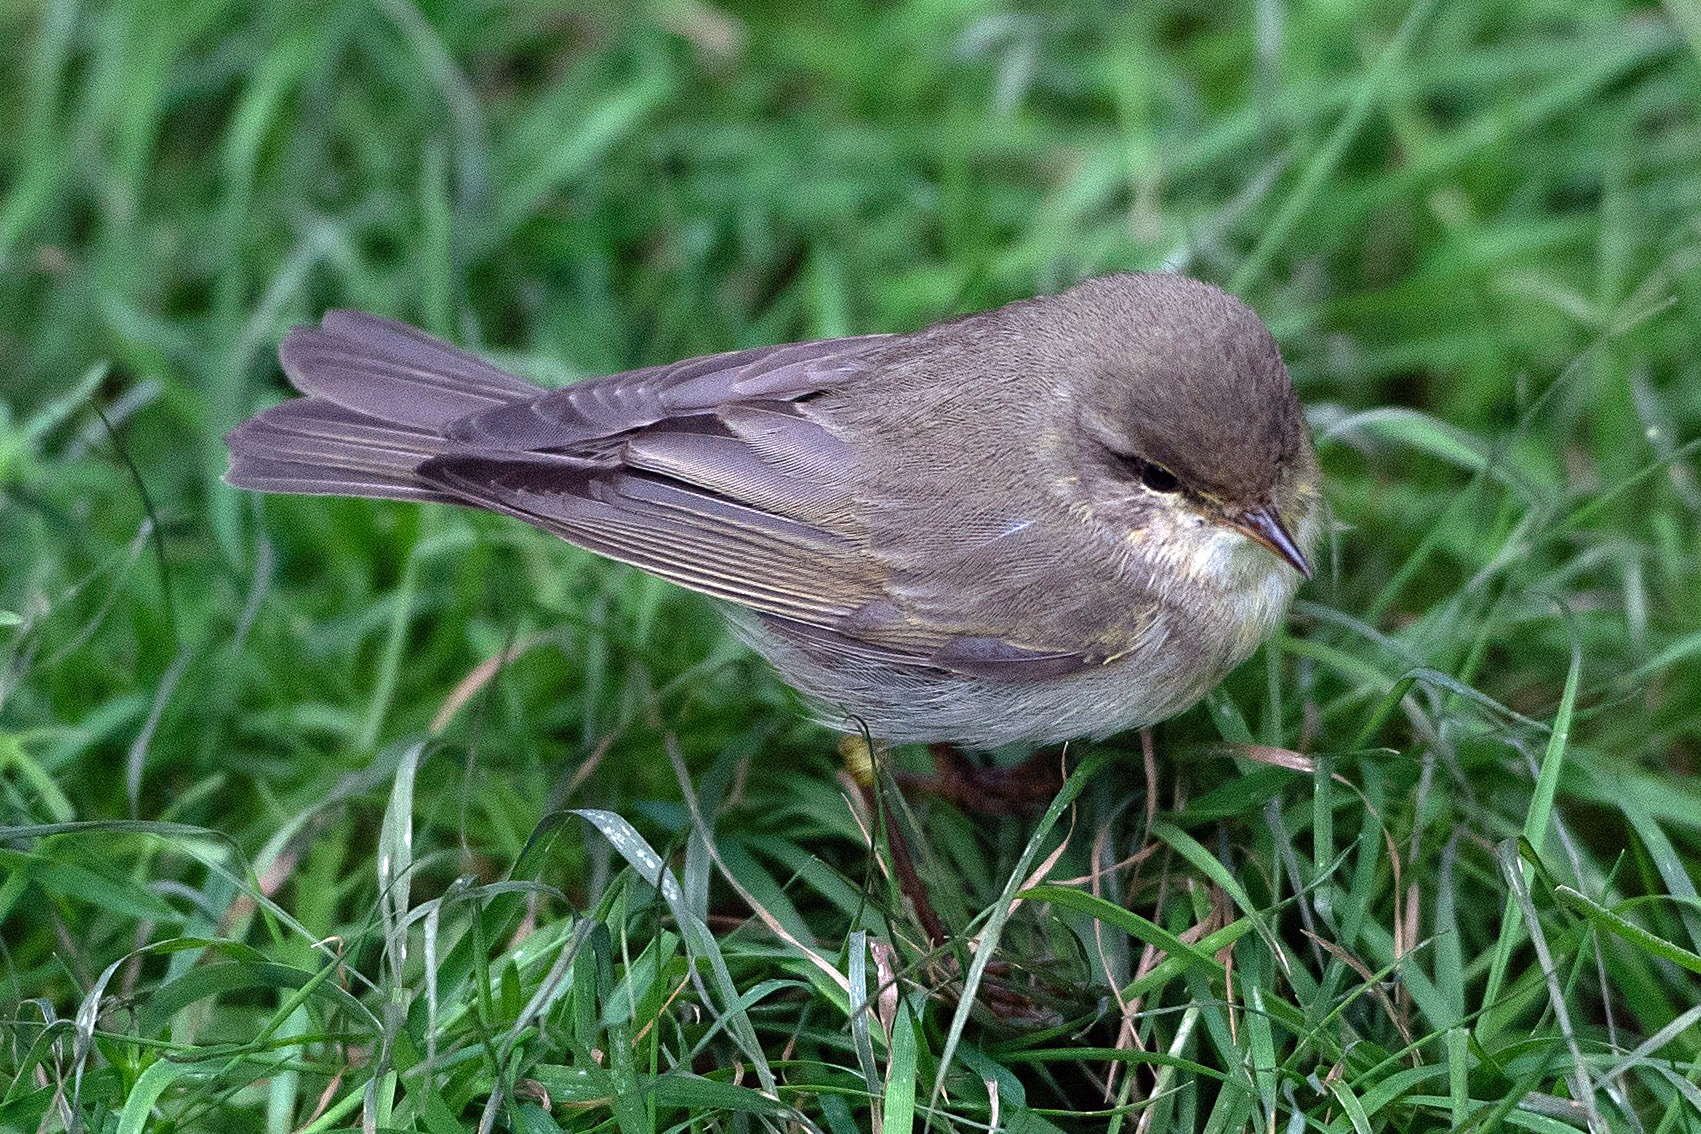
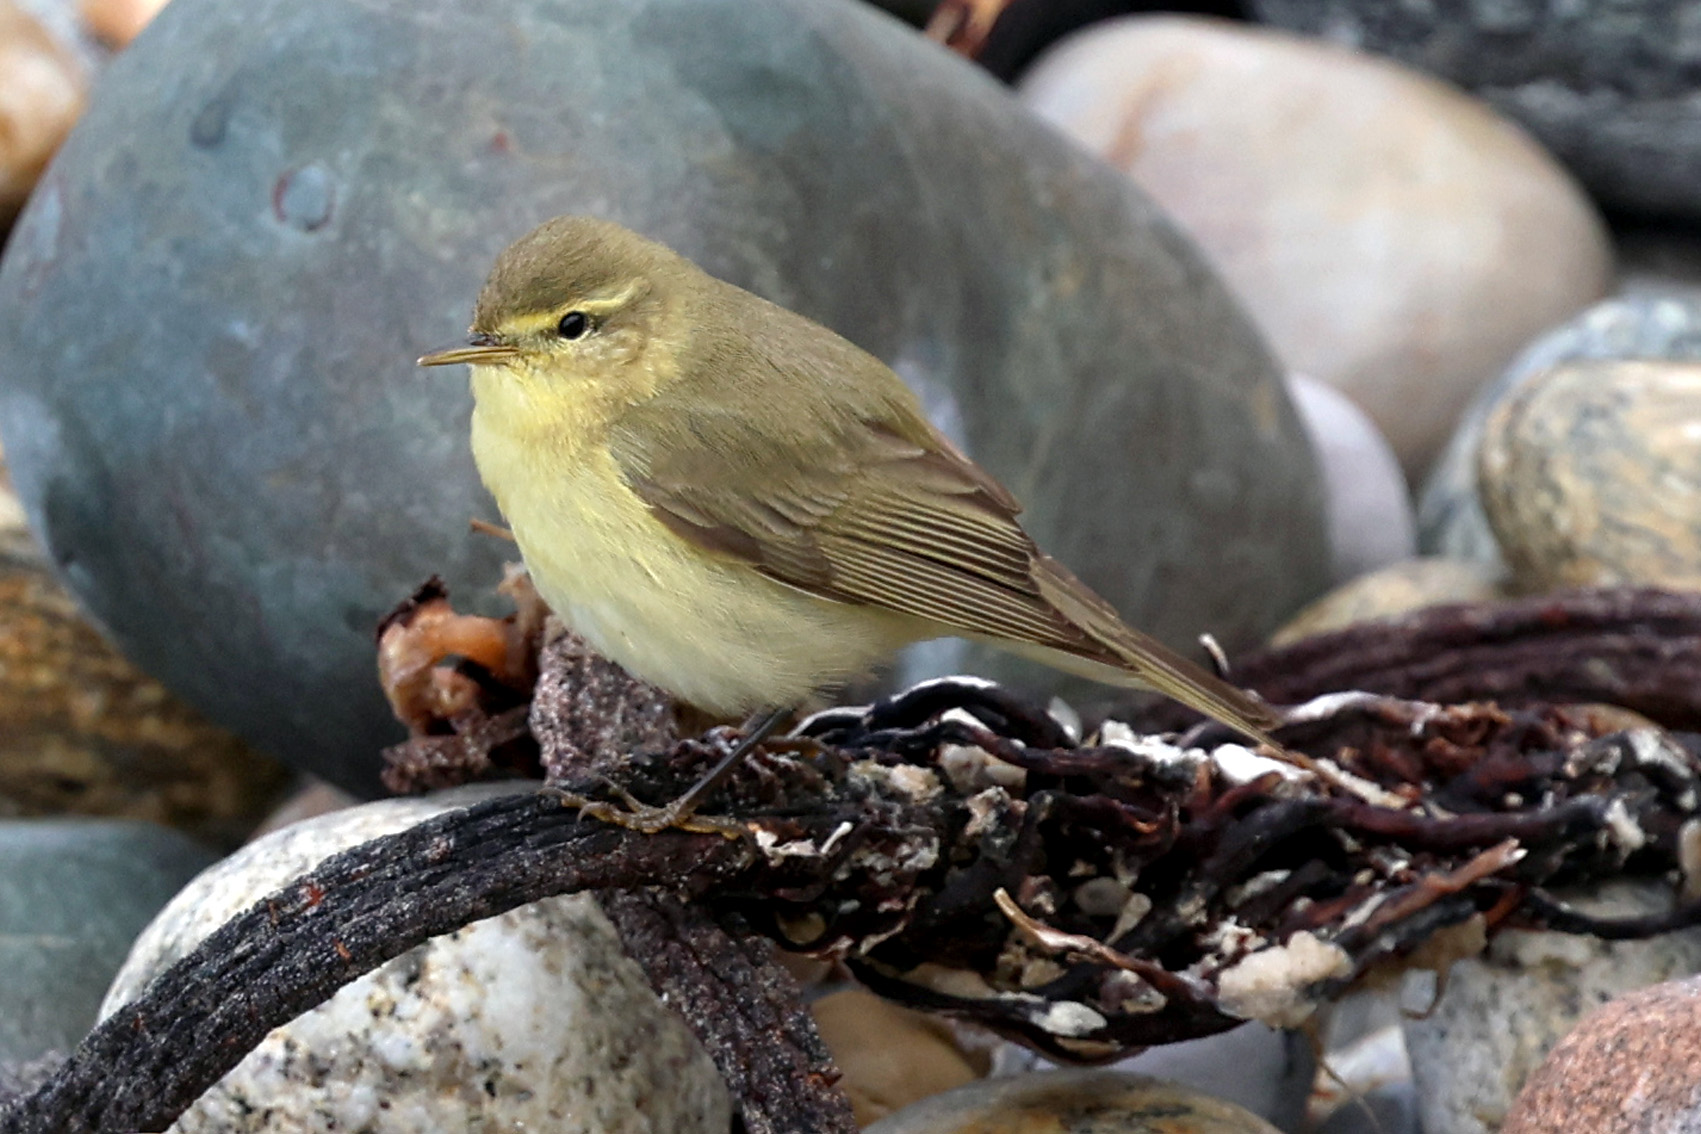
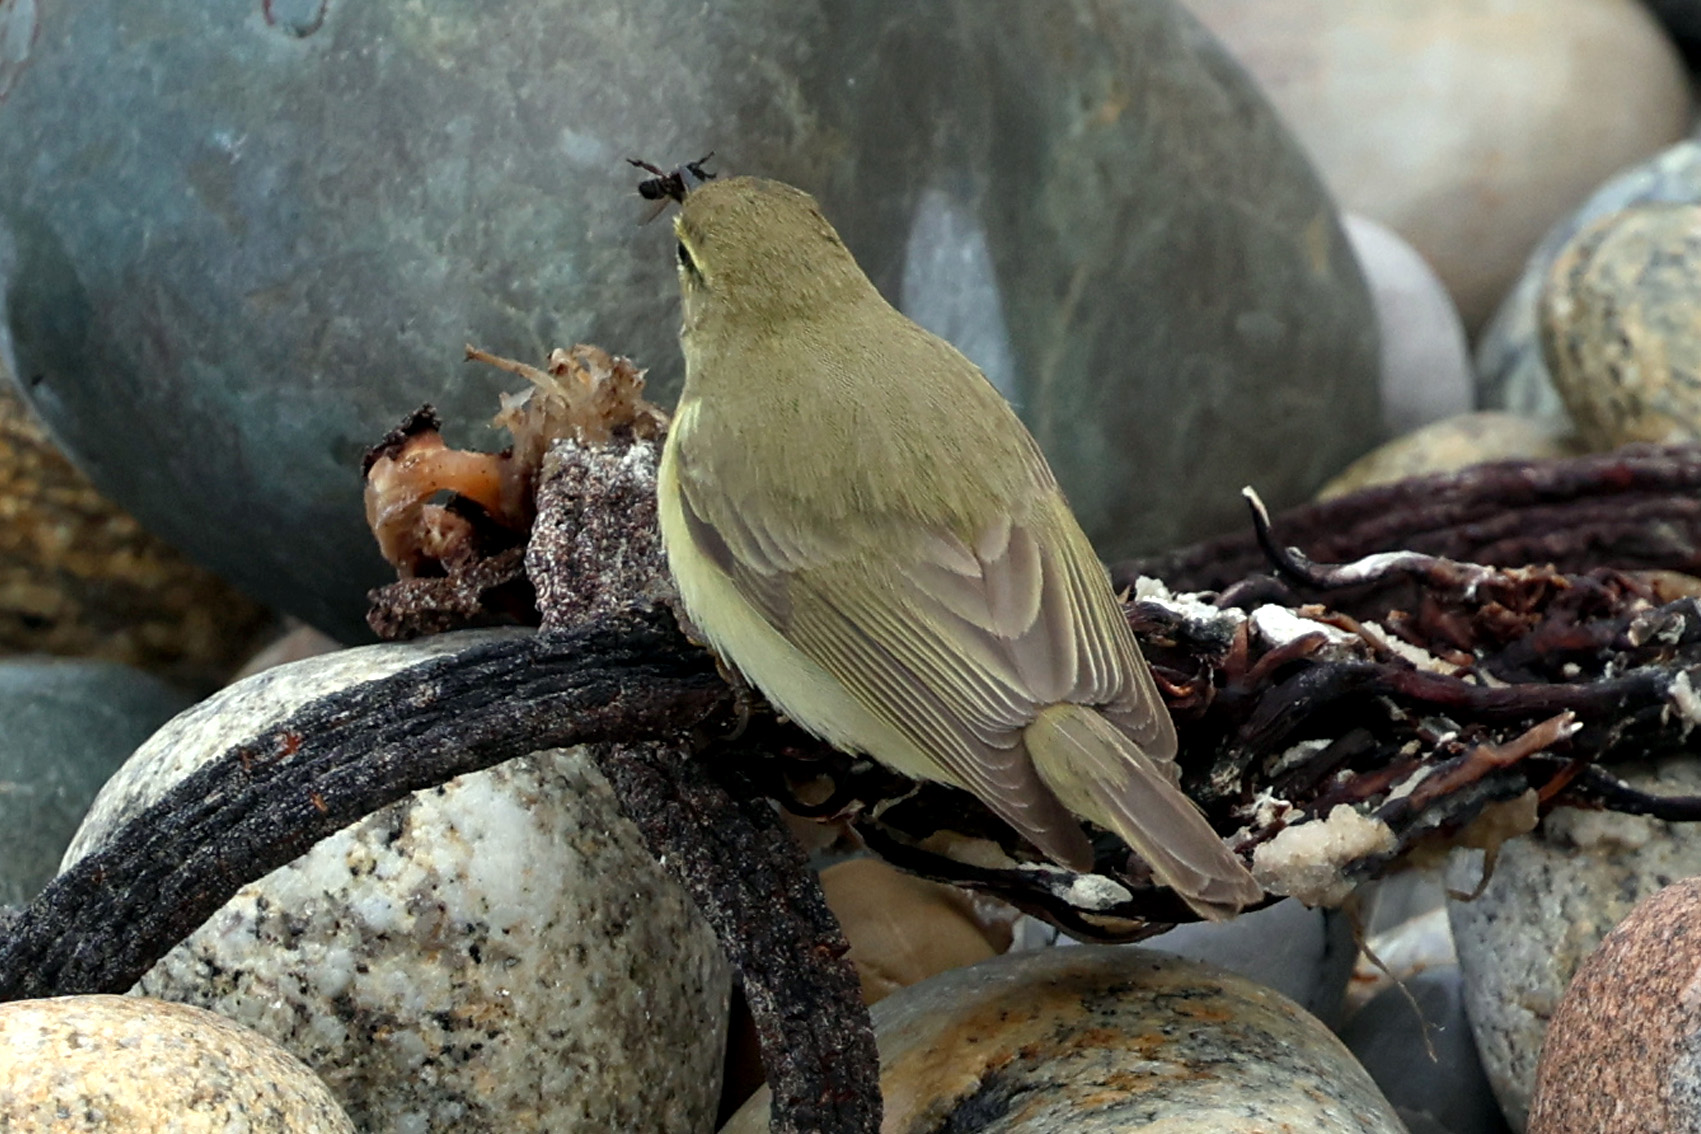
• Le 30 septembre 2026, Philippe J. Dubois a observé un Pouillot fitis dans un tamaris puis sur la laisse de mer de la plage de Pourdéver sur l’île de Sein (Finistère). Il s’agit d’un jeune oiseau au plumage typique pour cet âge, c’est-à-dire de teinte générale jaune, la mandibule inférieure étant orangée à pointe sombre et la supérieure également en partie orangée. Toutefois, cet individu présentait des tarses d’un noir franc, tandis que ses doigts étaient brun noirâtre. L’oiseau est resté silencieux.
VI – Conclusion
Compte tenu de l’important chevauchement avec acredula, ainsi que de la présence d’oiseaux ressemblant à yakutensis dans l’aire de répartition d’acredula et de trochilus, il reste difficile et sans doute impossible de préciser avec certitude l’appartenance subspécifique des Pouillots fitis ternes et/ou à pattes sombres vus en Europe de l’Ouest.
L’analyse des photos semble toutefois montrer que la coloration noirâtre des pattes, plus que la pâleur du plumage, est un marqueur fort de l’appartenance aux sous-espèces nordique et orientale. Et la conjonction des deux critères (plumage terne et pattes noirâtres) rend plus vraisemblable encore l’appartenance d’un Pouillot fitis aux sous-espèces acredula ou yakutensis. En outre, la très faible proportion d’oiseaux de phénotype P4, en particulier les plus marqués, en France et en Europe de l’Ouest, est compatible avec d’authentiques individus égarés appartenant à la sous-espèce yakutensis.
Pour affiner cette intuition, l’analyse de données biométriques (recueillies lors de séances de baguage) apporterait sans doute des éléments supplémentaires, puisque la longueur alaire des sous-espèces est corrélée à la distance de migration. Il serait également intéressant de faire la distinction entre les oiseaux nicheurs et les non nicheurs, d’analyser la répartition des périodes d’observation (printemps ou automne) et, dans la mesure du possible, de distinguer les juvéniles des adultes. Mais pour l’heure, les contrôles d’oiseaux bagués (et d’éventuelles analyses génétiques) restent l’unique moyen de préciser l’origine de ces Pouillots fitis au plumage inhabituel.
Afin de ne pas passer à côté de la présence d’un potentiel yakutensis égaré en France, il serait intéressant que les ornithos rapportent toutes leurs observations de Pouillot fitis à pattes noires (y compris ceux qui ont un plumage coloré), si possible en les documentant avec des photos, comme cela est généralement le cas pour les oiseaux au plumage terne.
Références : • Barriocanal C. & Robson D. (2007). Spring passage of Willow Warbler Phylloscopus trochilus across the western Mediterranean: comparing islands with the mainland. Ardea 95(1) : 91-96. • Beauvallet Y., Guignard N., Perroi P.-Y., Moyon C. & SCOPS (2019). L’île de Porquerolles (Provence, France), une halte migratoire pour les passereaux transméditerranéens ? Phénologie, durée de séjour et impact sur leur masse corporelle. Bilan 2008-2017. Travaux scientifiques du Parc national de Port-Cros 33 : 17-62. • Bensch S., Bengtsson G. & Åkesson S. (2006). Patterns of stable isotope signatures in Willow Warbler Phylloscopus trochilus feathers collected in Africa. Journal of Avian Biology 37 : 323-330. • Bensch S., Grahn M., Müller N., Gay L. & Åkesson S. (2009). Genetic, morphological, and feather isotope variation of migratory willow warblers show gradual divergence in a ring. Molecular Ecology 18(14) : 3087-3096. • Chamberlain C.P., Bensch S., Feng X., Åkesson S. & Andersson T. (2000). Stable isotopes examined across a migratory divide in Scandinavian willow warblers (Phylloscopus trochilus trochilus and Phylloscopus trochilus acredula) reflect their African winter quarters. Proc. R. Soc. London B 267 :43-48. • Clement P. (2020). Willow Warbler (Phylloscopus trochilus), version 1.0. In del Hoyo J., Elliott A., Sargatal J., Christie D.A. & de Juana E. (eds), Birds of the World. Cornell Lab of Ornithology, Ithaca. • Conder P.J. & Keighley J. (1950). The leg colouration of the Willow-Warbler and Chiffchaff. British Birds 43 : 238-240. • Cramp S. & Simmons K.E.L. (2020). BWP : Birds of the Western Palearctic app. NatureGuides Ltd. • Hedenström A. & Petterson J. (1987). Migration routes and wintering areas of willow warblers Phylloscopus trochilus (L.) ringed in Fennoscandia. Ornis Fennica 64 :137-143. • Kok D. & van Duivendijk N. (2001). Masters of Mystery Solution: greyish Willow Warbler. Dutch Birding 23(4): 211-215. • Lerche-Jørgensen M., Willemoes M., Tøttrup A.P., Snell K.R.S. & Thorup K. (2017). No apparent gain from continuing migration for more than 3000 kilometres : willow warblers breeding in Denmark winter across the entire northern savannah as revealed by geolocators. Movement Ecology 5 : 17. • Lundberg M., Liedvogel M., Larson K., Sigeman H., Grahn M., Wright A., Åkesson S. & Bensch S. (2017). Genetic differences between willow warbler migratory phenotypes are few and cluster in large haplotype blocks. Evolution Letters 1-3 : 155-168. • Sokolovskis K., Bianco G., Willemoes M., Solovyeva D., Bensch S. & Åkesson S. (2018). Ten grams and 13,000 km on the wing – route choice in willow warblers Phylloscopus trochilus yakutensis migrating from Far East to East Africa. Movement Ecology 6 : 20. • Sokolovskis K., Lundberg M., Liedvogel M., Solovyeva D., Åkesson S., Willemoes M. & Bensch S. (2019). Phenotypic and genetic characterization of the East Siberian Willow Warbler (Phylloscopus trochilus yakutensis Ticehurst, 1935) in relation to the European subspecies. Journal of Ornithology 160 : 721-731. • van Duivendijk N. (2011). Advanced Bird ID Handbook. The Western Palearctic. New Holland, Publishers, London. • van Duivendijk N. (2024). Identifier les oiseaux d’Europe. Le guide ultime. Tome 2. Delachaux et Niestlé, Paris.
Contact : Grégoire Duffez (gregoire.duffez@gmail.com)
Citation recommandée : Duffez G. (2026). À propos des Pouillots fitis ternes/à pattes sombres vus en France. Post-Ornithos 3 : e2026.10.21.
